PARTE XIV · Mente, conducta y desarrollo humano
143
El sistema nervioso: señales, circuitos y organización
Cómo la comunicación celular sostiene funciones y qué evidencia permite estudiarlas
En este capítulo
Ejemplo construido. Una persona aprende a encajar una pieza sin mirarla continuamente. Al principio necesita detenerse y corregir el movimiento; después lo realiza con menos esfuerzo. Describir la mejora en tiempo y errores es una observación sobre conducta. Explicarla exige estudiar señales sensoriales, actividad muscular y cambios en circuitos, sin suponer que existe una célula que guarda el procedimiento entero. Tampoco una imagen cerebral más intensa demuestra por sí sola que se haya formado una memoria.
El sistema nervioso permite integrar información del cuerpo y del entorno, regular funciones y organizar acciones. Su actividad depende de células, conexiones, estados corporales e historia de desarrollo y aprendizaje. Para comprenderlo conviene conectar tres niveles: cómo una célula genera señales, cómo éstas interactúan en circuitos y qué relaciones permiten establecer con una función. Saltar directamente desde una región coloreada a una emoción o una decisión omite parte de la explicación.
143.1. Neuronas, glía y comunicación sináptica#
La neurona es una célula especializada en recibir, transformar y transmitir señales. El soma, o cuerpo celular, contiene el núcleo y buena parte de la maquinaria de mantenimiento. Las dendritas son prolongaciones que suelen recibir contactos; el axón conduce señales hacia terminales que pueden comunicar con otras células. Es una organización frecuente, con variaciones importantes entre tipos neuronales. No todas las neuronas tienen idéntica forma ni todos los contactos se realizan sobre una dendrita.
Una señal eléctrica nerviosa implica movimientos de iones, partículas con carga, y propiedades de la membrana celular. El potencial de membrana es la diferencia de potencial eléctrico entre interior y exterior. No significa que toda la célula esté cargada de manera uniforme como una batería aislada. Los canales son proteínas que permiten el paso de ciertos iones; los transportadores desplazan sustancias mediante otros mecanismos. Ambos regulan el intercambio; sus concentraciones y la permeabilidad de la membrana condicionan el potencial. El mantenimiento de gradientes requiere procesos metabólicos.
Los cambios pueden ser graduales o tomar la forma de un potencial de acción, un episodio breve que se regenera al propagarse por una membrana excitable. El umbral es el nivel de potencial, dependiente del estado celular, a partir del cual se desencadena ese episodio; un estímulo más intenso no produce necesariamente un impulso individual de amplitud proporcionalmente mayor. El capítulo de John H. Byrne sobre potenciales de reposo y de acción explica esta diferencia entre respuestas graduadas e impulsos.
Las unidades importan. Un milivoltio, mV, es una milésima de voltio; un milisegundo, ms, una milésima de segundo. Medir amplitud, duración y frecuencia son operaciones diferentes. La frecuencia de disparo cuenta impulsos por unidad de tiempo. No expresa por sí misma un significado como «dolor», «recuerdo» o «sí». Interpretarla requiere conocer la célula, el circuito, las condiciones y el patrón de actividad.
Ejemplo construido. En una ventana de dos segundos se registran diez impulsos de una célula y en otra ventana equivalente veinte. Sus frecuencias medias son cinco y diez impulsos por segundo. Las cifras no indican si los impulsos estuvieron espaciados regularmente o concentrados en ráfagas. Dos secuencias pueden tener la misma media y distinta organización temporal. La medida conserva información sobre cantidad, pero pierde parte de la estructura del registro.
La sinapsis es una unión funcional por la que una célula influye en otra. En una sinapsis química, la célula presináptica libera un neurotransmisor, un mensajero químico, que actúa sobre receptores, proteínas capaces de reconocerlo e iniciar una respuesta, de la célula postsináptica. Los prefijos describen posiciones respecto a esa unión: una misma neurona puede ser postsináptica en un contacto y presináptica en otro. La sustancia liberada no transporta una experiencia completa ni tiene un significado psicológico fijo.
El efecto depende del receptor y del estado celular. Una entrada excitadora favorece la generación de un potencial de acción en las condiciones consideradas; una inhibidora la reduce. Inhibición no equivale necesariamente a volver el potencial más negativo en cualquier situación. Tampoco excitación significa una emoción agradable ni inhibición una orden consciente de contenerse. Son descripciones de efectos en un sistema, que no deben confundirse con valoraciones de conducta.
Las sinapsis eléctricas permiten paso directo de corriente mediante uniones entre células. Las químicas ofrecen otros mecanismos de regulación y transformación. El capítulo de Byrne sobre transmisión en el sistema nervioso central presenta ambos tipos y la integración de entradas. Una conexión no es un cable que transmite siempre el mismo resultado: su eficacia y su efecto dependen de condiciones y pueden cambiar.
La glía comprende diversos tipos de células que participan en el funcionamiento nervioso. Los astrocitos contribuyen a regular el entorno químico; los oligodendrocitos forman mielina en el sistema central y las células de Schwann en el periférico; la microglía participa en funciones inmunitarias y en respuestas a cambios del tejido. La mielina es una envoltura de membranas que modifica la conducción en ciertos axones. No todos los axones están mielinizados.
La exposición de Jack C. Waymire sobre tipos celulares permite distinguir estas funciones y las variaciones de estructura neuronal. No se necesita fijar una proporción universal entre glía y neuronas para comprender su papel: los recuentos dependen del territorio y del método. Reducir la glía a material de relleno omite procesos que hacen posible la señalización, el mantenimiento y el desarrollo del tejido.
143.2. Sistema nervioso central y periférico#
El sistema nervioso central, SNC, comprende el encéfalo y la médula espinal. El encéfalo incluye los hemisferios cerebrales, el cerebelo y el tronco encefálico, entre otras estructuras. El sistema nervioso periférico, SNP, incluye nervios y ganglios fuera del SNC. Esta división describe organización anatómica y necesita matices en estructuras de transición. Ambos forman un sistema de comunicación e integración; «central» no significa que sólo allí se procese información.
Un nervio agrupa axones y tejidos asociados en el SNP. Un ganglio contiene agrupaciones de cuerpos neuronales periféricos. En el SNC se habla de núcleos para ciertas agrupaciones de cuerpos celulares y de tractos o fascículos para conjuntos de axones, aunque existen nombres históricos que no siguen perfectamente esta convención. Un núcleo anatómico no es el núcleo situado dentro de una célula. La escala de descripción debe quedar clara.
La sustancia gris contiene abundantes cuerpos celulares, dendritas y sinapsis, además de otras estructuras; la sustancia blanca contiene muchos axones mielinizados. Esta distinción no divide el tejido en una parte que piensa y otra que sólo transporta. Las conexiones contribuyen a la función tanto como las regiones que relacionan. El panorama anatómico de Nachum Dafny presenta divisiones y organización central que sirven para orientarse, sin convertir el atlas en un catálogo de facultades mentales.
Las vías aferentes conducen información hacia una estructura de referencia; las eferentes salen de ella. Cuando se habla del SNC, suelen designar entradas sensoriales y salidas motoras o reguladoras. Las palabras no identifican de forma absoluta una célula: hay que decir respecto a qué centro se define la dirección. Un nervio puede contener fibras con direcciones y funciones distintas.
La información sensorial incluye condiciones internas, no sólo luz o sonido del exterior. La posición de articulaciones, el estiramiento muscular y señales de órganos participan en la regulación de acciones y del estado corporal. Las salidas afectan músculos y órganos mediante circuitos que incluyen distintas estaciones. Percibir, actuar y mantener condiciones internas no son sistemas completamente independientes: una acción modifica la información que llega después.
La organización somática relaciona sensibilidad corporal y control de músculo esquelético; la autonómica regula, entre otras funciones, órganos internos mediante vías simpáticas, parasimpáticas y circuitos entéricos vinculados al aparato digestivo. «Autonómico» no significa aislado del encéfalo ni independiente de toda experiencia. Tampoco simpático y parasimpático representan siempre un acelerador y un freno generales para todo el organismo.
El capítulo de Patrick Dougherty sobre control autonómico central describe una red de interconexiones entre estructuras centrales y salidas autonómicas. La consecuencia conceptual es que regular una función corporal requiere relaciones, señales de retorno y distintos tiempos de respuesta. No basta atribuirla a una única estación o a una oposición global entre dos sistemas.
Un reflejo es una respuesta organizada mediante circuitos ante una entrada; no exige una deliberación consciente previa. Puede incluir integración medular y estar modulado por otras vías. El reflejo de estiramiento constituye un ejemplo de conexiones sensoriales, motoras e inhibidoras, descrito en el capítulo de transmisión de Byrne. Su utilidad explicativa reside en mostrar una relación de circuito, no en reducir toda conducta a una cadena refleja.
Ejemplo construido. Una persona sostiene un recipiente mientras otra añade material. Mantenerlo en posición exige responder a cambios de carga, ajustar la actividad muscular y utilizar información de posición. Si además observa una marca de llenado, la tarea incorpora otras entradas y decisiones. «Sostener» es una descripción conductual compacta; la explicación nerviosa debe descomponer operaciones y relaciones sin confundirlas con una sola orden que baja desde el cerebro.
El mapa anatómico sitúa por dónde pueden circular señales. No establece por sí solo qué actividad ocurre en un momento ni cómo cambia después del aprendizaje. De forma análoga, conocer la red de caminos de una región no informa directamente del tráfico actual. La comparación tiene un límite: los circuitos nerviosos son tejido vivo y sus propiedades cambian, no una infraestructura pasiva de transporte.
143.3. Organización funcional y redes distribuidas#
Un circuito es un conjunto de células y conexiones cuya interacción se estudia respecto a una función. Una red puede representar relaciones a mayor escala, por ejemplo entre poblaciones o regiones. El significado de sus nodos y conexiones debe definirse: una neurona individual, un conjunto de células y una región de imagen no son unidades intercambiables. El número de enlaces depende de la escala y del criterio empleado para reconocerlos.
La organización funcional incluye especialización e interacción. Algunas estructuras contribuyen de manera particular a ciertas operaciones, pero una tarea compleja suele requerir varias operaciones relacionadas. Reconocer una palabra y responder en voz alta no es una unidad simple: exige procesamiento visual, relaciones con conocimientos, selección de respuesta y acción motora. La tarea completa y cada componente pueden producir patrones diferentes.
Convergencia significa que varias entradas llegan a un elemento; divergencia, que una salida influye sobre varios destinos. Las conexiones recurrentes permiten que efectos posteriores modifiquen actividad anterior en la red. La introducción de Byrne a neuronas y redes presenta estos motivos. Saber que existe realimentación no permite anticipar su resultado sin conocer signos, intensidades, demoras y propiedades celulares.
Ejemplo construido. En un modelo hipotético, una entrada S excita dos poblaciones A y B; A excita una población C y B activa una población inhibidora I que reduce la respuesta de C. No se presenta como circuito identificado en un cerebro. Sirve para distinguir una ruta que facilita una respuesta de otra que la limita. El resultado depende de cuánto y cuándo actúe cada ruta, no sólo de la presencia de flechas.
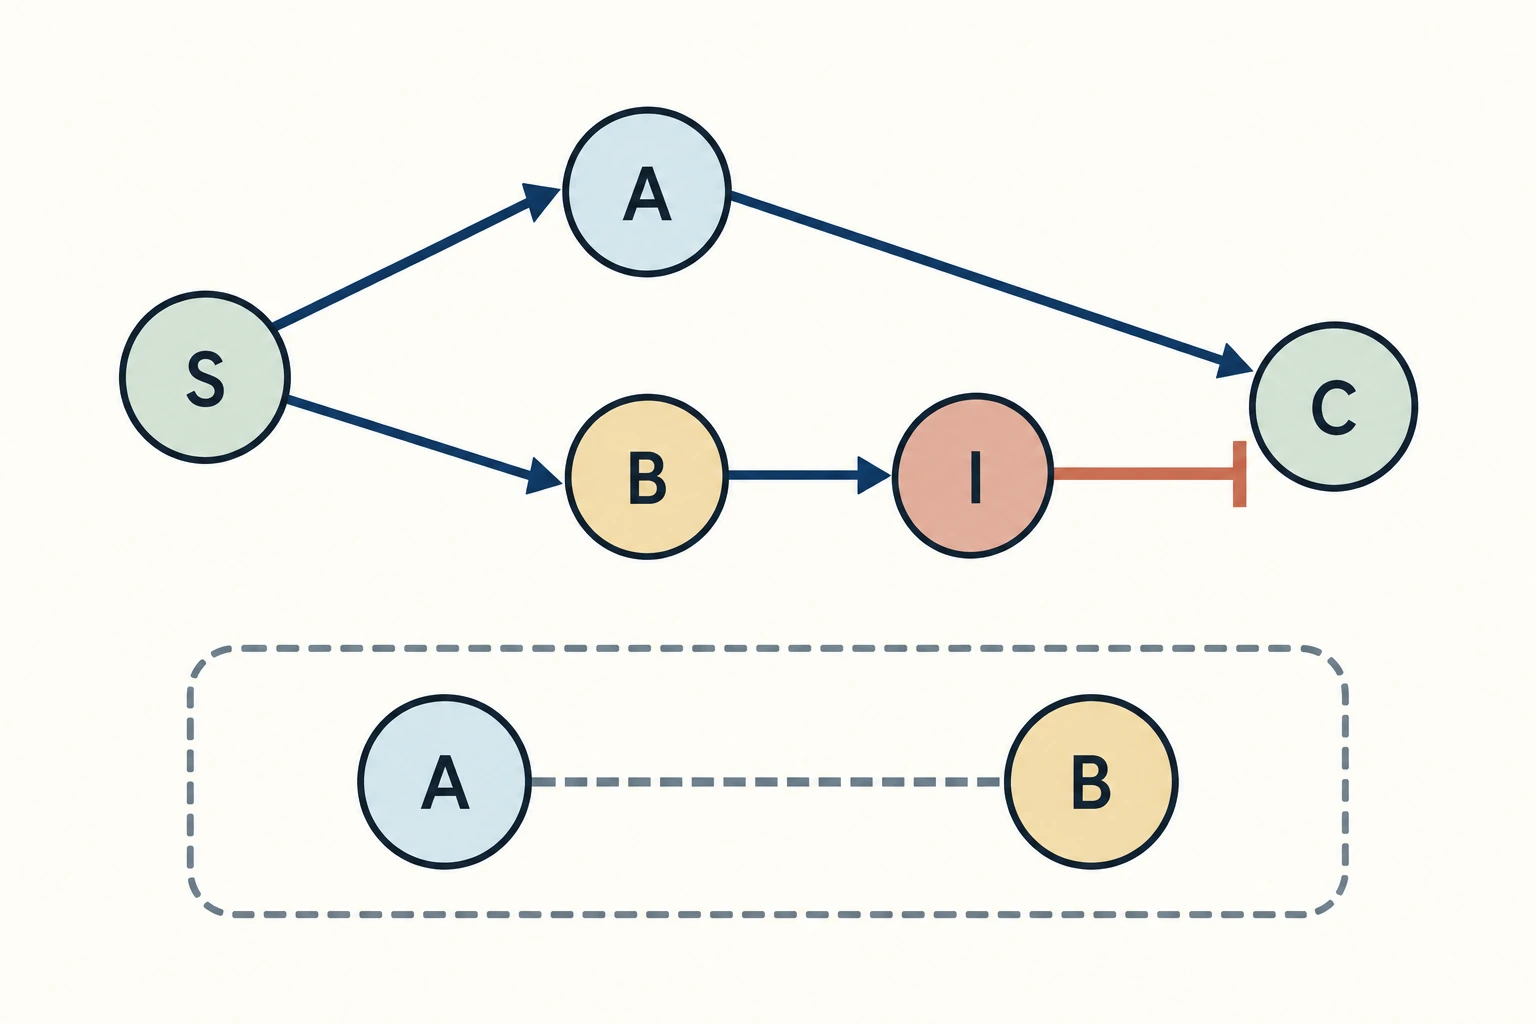
Ejemplo construido. Las rutas indican efectos definidos para el modelo; una asociación entre registros no demuestra una conexión directa. Sin intensidades y tiempos no se calcula la respuesta final de C
La conectividad estructural describe conexiones anatómicas; la funcional, dependencias estadísticas entre actividades medidas. Si A y B cambian juntas, podrían estar relacionadas directamente, recibir una entrada común o participar en una ruta indirecta. Un enlace estadístico no contiene por sí mismo una dirección causal. La conectividad efectiva busca representar influencias dirigidas mediante modelos; su interpretación depende del modelo y de la evidencia que lo identifica.
Las funciones distribuidas no implican que todas las partes sean equivalentes. Una lesión de una conexión o de un nodo puede afectar un conjunto de operaciones. A la vez, observar un déficit no demuestra que la región dañada realizara sola toda la tarea. Puede haberse interrumpido una entrada, una coordinación o la regulación de otra estructura. La explicación debe relacionar el cambio con mecanismos y con alternativas.
Una región puede participar en tareas diferentes. El estudio de Poldrack y colaboradores sobre relaciones entre términos cognitivos y mapas de actividad examina resultados publicados a gran escala y discute límites de relacionar conceptos con activación. Sus asociaciones generan hipótesis; no son una tabla que permita leer directamente un estado mental individual. La etiqueta de una tarea también necesita análisis: tareas con nombres distintos pueden compartir operaciones.
Los mapas topográficos conservan ciertas relaciones de vecindad, por ejemplo en representaciones sensoriales o motoras. Una representación ampliada no indica necesariamente que una parte corporal sea mayor ni que valga más. El mapa representa una organización nerviosa respecto a entradas o salidas. No hay que imaginar un pequeño observador interno que contemple ese mapa: explicar cómo se utiliza requiere estudiar las relaciones con otros circuitos.
La actividad depende del estado del sistema. Una entrada puede generar respuestas distintas según actividad previa, adaptación, atención y condiciones corporales. Esta dependencia no vuelve arbitraria la función; introduce variables que deben medirse o controlarse. El aprendizaje del ejemplo inicial debe evaluarse con una tarea definida y con condiciones comparables, sin atribuir toda diferencia a una supuesta mejora global del cerebro.
143.4. Plasticidad y desarrollo de circuitos#
La plasticidad es la capacidad de cambiar propiedades o conexiones en respuesta a actividad, experiencia, desarrollo u otras condiciones. Incluye fenómenos de diferentes escalas y duraciones. Un cambio breve de eficacia sináptica no equivale a la reorganización duradera de una habilidad. Tampoco plasticidad significa que cualquier capacidad pueda alcanzarse sin límites mediante voluntad o repetición.
El capítulo de Byrne sobre plasticidad sináptica muestra que la eficacia de una conexión puede aumentar o disminuir y depender de actividad propia o de otras vías. La potenciación describe un aumento y la depresión una disminución bajo criterios definidos. «A largo plazo» se refiere a la persistencia del cambio en la preparación estudiada; no certifica que dure toda la vida ni identifica por sí misma una memoria personal.
Medir plasticidad exige distinguir modificación del estímulo, del registro y del sistema. Si una respuesta aumenta, puede haber cambiado la entrada efectiva o el contacto del instrumento. Un experimento debe mantener o comprobar esas condiciones antes de atribuir el aumento a una conexión. Los controles y las comparaciones siguen los principios de los capítulos 131–133: una señal diferente necesita una explicación de qué varió y cómo se sabe.
Ejemplo construido. Una preparación experimental recibe un estímulo de prueba definido y produce una amplitud media de respuesta de dos unidades del indicador elegido, medida respecto a una línea de base definida. Después de una intervención produce tres bajo condiciones equivalentes y con la misma referencia. El aumento relativo es de 50 %. Esa comparación no demuestra, sin controles, qué mecanismo lo produjo. Ni las unidades arbitrarias del instrumento ni el porcentaje pueden traducirse directamente en «50 % más de aprendizaje».
El desarrollo establece condiciones para las conexiones. Las células se diferencian, se desplazan y extienden prolongaciones que interactúan con señales del entorno. El capítulo de Andrew Bean sobre formación, supervivencia y eliminación de sinapsis describe mecanismos de guía y de estabilización. La precisión resultante no requiere imaginar que cada axón conoce un plano completo: surge de interacciones locales y condiciones del desarrollo.
Formar conexiones y eliminar otras pueden contribuir a organizar circuitos. Más sinapsis no equivale automáticamente a mejor desempeño, y eliminar una conexión no significa siempre pérdida de una capacidad. Importa cuáles se conservan, su eficacia y cómo se relacionan. La metáfora de podar resulta limitada si sugiere que existe un jardinero que reconoce de antemano todas las conexiones útiles.
Genes y experiencia no son causas independientes que puedan repartirse en porcentajes generales del cerebro. Las condiciones de desarrollo influyen en qué oportunidades de actividad existen y en cómo responde el tejido. Un resultado puede depender de la interacción entre una propiedad y un entorno. El análisis necesita especificar la población, la capacidad y la variación estudiadas, como en otros problemas de causalidad.
Hay periodos en los que una experiencia tiene efectos particulares sobre el desarrollo de ciertos sistemas. No se deduce que exista una única edad límite para aprender cualquier cosa. La oportunidad depende de la función y de las condiciones. Extrapolar una observación sobre un circuito sensorial a toda la educación transforma una relación específica en una regla general que no ha sido demostrada.
Cambiar una conducta tampoco demuestra por sí solo qué modificación celular ocurrió. Una persona puede mejorar porque aprende una estrategia, reconoce mejor los errores o modifica el modo de usar una herramienta. Estos cambios tienen realización nerviosa, pero identificarlos exige evidencia adicional. El nivel conductual no se vuelve menos válido por no describir cada sinapsis; responde a otra pregunta y necesita sus propios criterios de medición.
Plasticidad, regeneración y compensación son conceptos diferentes. Regenerar implica restituir elementos o prolongaciones dañados; compensar puede consistir en utilizar otras estrategias o circuitos para mantener una función. No hay que convertir la existencia de plasticidad en una promesa de recuperación completa. Para la explicación general importa reconocer mecanismos y límites; las decisiones clínicas requieren evidencia específica que este capítulo no sustituye.
143.5. Métodos de investigación y límites de localización#
La investigación combina observación anatómica, registros de actividad, medición de conducta y perturbaciones controladas. Cada método tiene una resolución espacial, el detalle de localización que puede distinguir, y una resolución temporal, el detalle de cambios en el tiempo. Estas propiedades no se resumen en que una técnica es mejor que otra: dependen de la pregunta y de las condiciones de medición.
La microscopía y los marcadores celulares permiten reconocer estructuras y tipos de células. Los registros eléctricos pueden examinar potenciales o actividad de células y poblaciones según la configuración. Una medida local de gran detalle no representa automáticamente todo el circuito. La selección de lo registrado determina qué preguntas pueden responderse y cuáles requieren otro método.
La electroencefalografía, EEG, registra diferencias de potencial mediante electrodos, habitualmente en el cuero cabelludo; la magnetoencefalografía, MEG, mide campos magnéticos asociados a actividad cerebral. La descripción del servicio de MEG del Instituto Nacional de Salud Mental estadounidense distingue ambos registros. Localizar sus fuentes exige modelos; no se observa directamente la actividad de cada neurona a través del cráneo.
La resonancia magnética permite obtener imágenes con distintos contrastes relacionados con propiedades del tejido. La resonancia funcional suele estudiar cambios ligados a la oxigenación y circulación de sangre, asociados a actividad nerviosa. La introducción del Instituto Nacional de Imagen Biomédica y Bioingeniería distingue aplicaciones anatómicas y funcionales. La señal funcional habitual es una medida indirecta, no una fotografía de impulsos ni una medición de pensamientos completos.
Un contraste compara condiciones definidas. Si una tarea se compara con otra, la diferencia depende de lo que ambas comparten y de lo que cambia. Un mapa no representa «toda la actividad de la tarea» si sólo muestra diferencias entre ellas. La ausencia de una diferencia visible tampoco demuestra ausencia de participación: puede existir actividad común, sensibilidad insuficiente o un umbral de presentación que oculte variación.
Ejemplo construido. En cien observaciones de una tarea P, una señal R aparece en ochenta; en cien de otra tarea Q, aparece en sesenta. Si ambas tareas eran igualmente frecuentes y sólo existían esas dos posibilidades, entre las 140 observaciones con R, ochenta corresponden a P: aproximadamente 57,1 %. Que R aparezca en 80 % de los casos P no permite concluir que 80 % de los casos R sean P. Se invierten condiciones distintas, como en el capítulo 127.
Esa inferencia inversa intenta deducir un proceso a partir de un patrón observado. Puede ser informativa si se conocen selectividad, frecuencias previas y condiciones de validación; no es necesariamente imposible ni queda justificada por una asociación aislada. En el ejemplo, cambiar la frecuencia de las tareas modifica la proporción resultante aunque se mantengan las respuestas condicionadas. Una región que participa en muchas operaciones proporciona evidencia menos específica para una sola.
Lesiones y perturbaciones pueden aportar evidencia causal, pero tienen límites propios. Una lesión afecta tejido, conexiones y respuestas posteriores; una intervención necesita comprobar su alcance y posibles efectos indirectos. Que una perturbación reduzca desempeño puede apoyar que una estructura contribuye bajo esas condiciones. No demuestra que contenga por sí sola toda la función ni que la relación sea idéntica después de compensación o en otra tarea.
Un modelo que predice una respuesta en datos nuevos aporta evidencia sobre regularidades. Su éxito debe evaluarse fuera de los datos que lo ajustaron, con cuidado frente a dependencias entre participantes o sesiones. Predicción y explicación no son idénticas: un indicador puede resultar útil sin identificar el mecanismo, y un modelo puede funcionar en una situación sin generalizar a otra. Los capítulos 128 y 136 dan los criterios estadísticos y causales necesarios para interpretar ese paso.
El estudio de Poldrack y colaboradores citado antes distingue descubrimiento de hipótesis y comprobación posterior, y reconoce límites de términos y mapas extraídos de documentos. Sus asociaciones entre documentos y mapas tampoco establecen diagnósticos individuales. La combinación de métodos debe buscar evidencia que responda a alternativas, no sólo acumular imágenes compatibles con una interpretación preferida.
En la persona que aprende a encajar la pieza, una explicación fundada puede relacionar cambios de estrategia, información sensorial y actividad de circuitos. Los resultados deben conservar sus niveles: tiempo y errores son medidas de desempeño; actividad registrada, una medida del sistema nervioso; cambios de conexión, una hipótesis que requiere evidencia apropiada. Esta distinción permite avanzar hacia percepción y memoria sin convertir una señal aislada en una explicación completa de la mente.
Preguntas de transferencia#
Una célula dispara el doble de impulsos. ¿Ha duplicado el significado de su mensaje?#
Mostrar respuesta razonada
Se ha duplicado la cantidad en una ventana definida si la comparación es equivalente. El significado depende del circuito y del patrón temporal, además de la frecuencia. No se deduce una duplicación de dolor, conocimiento o fuerza sin una relación comprobada con esa variable.
Dos regiones muestran actividad correlacionada. ¿Están conectadas directamente?#
Mostrar respuesta razonada
Pueden existir conexión directa, rutas indirectas o entradas comunes. La correlación describe dependencia entre registros y no identifica por sí sola anatomía ni dirección causal. La figura muestra una entrada común como posibilidad, no como explicación obligatoria de toda correlación.
Una intervención aumenta 50 % una respuesta sináptica. ¿Aumentó 50 % el aprendizaje?#
Mostrar respuesta razonada
El porcentaje pertenece al indicador medido bajo determinadas condiciones. Aprendizaje requiere criterios conductuales y relaciones comprobadas con el cambio celular. También hay que excluir cambios del estímulo o del registro. Aumentos de una medida no se trasladan automáticamente a otra escala.
Una región se activa durante una tarea. ¿Puede identificarse esa tarea al observar la activación?#
Mostrar respuesta razonada
Hace falta saber con qué frecuencia aparece la señal en otras tareas y qué posibilidades se consideran. En el ejemplo, R aparece en 80 % de P, pero sólo 57,1 % de las observaciones R corresponden a P bajo frecuencias iguales. La inferencia inversa puede aportar información, pero exige contexto y validación.
Fuentes y lecturas del capítulo#
- John H. Byrne. Resting Potentials and Action Potentials, sección 1, capítulo 1 de Neuroscience Online, McGovern Medical School, revisión de enero de 2026. Consultadas respuestas graduadas, umbral y propagación; no se reproducen como universales sus ejemplos de voltaje ni una relación lineal general entre estímulo y frecuencia.
- John H. Byrne. Synaptic Transmission in the Central Nervous System, sección 1, capítulo 6, revisión de verano de 2023. Consultados circuito de estiramiento, integración y sinapsis químicas y eléctricas. Los neurotransmisores no se interpretan como emociones fijas.
- Jack C. Waymire. Organization of Cell Types, sección 1, capítulo 8, revisión de 6 de julio de 2026. Consultadas estructura neuronal y funciones gliales; no se trasladan cifras generales de abundancia celular del texto.
- Nachum Dafny. Overview of the Nervous System, sección 2, capítulo 1, revisión de 7 de octubre de 2020. Consultadas organización central, periférica y distinciones anatómicas; el atlas no se utiliza como prueba de exclusividad funcional.
- Patrick Dougherty. Central Control of the Autonomic Nervous System and Thermoregulation, sección 4, capítulo 3, revisión de 20 de octubre de 2020. Consultada introducción a la red autonómica central; no se trasladan afirmaciones clínicas ni sus porcentajes.
- John H. Byrne. Introduction to Neurons and Neuronal Networks, revisión de 8 de septiembre de 2025. Consultados motivos de convergencia, divergencia y realimentación. El circuito de la figura es propio y construido, sin amplitudes derivadas del manual.
- John H. Byrne. Synaptic Plasticity, sección 1, capítulo 7, revisión de verano de 2023. Consultados cambios de eficacia y duración; no se identifica una forma de plasticidad con toda memoria.
- Andrew Bean. Synapse Formation, Survival, and Elimination, sección 1, capítulo 9, revisión de 10 de septiembre de 2024. Consultadas guía de axones, formación y modificación de conexiones; no se reproducen promesas terapéuticas.
- Instituto Nacional de Salud Mental de Estados Unidos. Magnetoencephalography (MEG) Core Facility. Consultados principios de EEG y MEG. Las prestaciones de un equipo o de condiciones favorables no se presentan como resolución garantizada universal.
- Instituto Nacional de Imagen Biomédica y Bioingeniería de Estados Unidos. Magnetic Resonance Imaging (MRI). Consultada distinción de imágenes anatómicas y funcionales, sin utilizar la página para decisiones de seguridad clínica.
- Russell A. Poldrack, Jeanette A. Mumford, Tom Schonberg, Donald Kalar, Bishal Barman y Tal Yarkoni. Discovering Relations Between Mind, Brain, and Mental Disorders Using Topic Mapping, PLOS Computational Biology 8(10), e1002707, 2012. Consultadas introducción, planteamiento y discusión de límites de términos y mapas; no se atribuye revisión de todos los artículos originales ni se trasladan categorías a diagnóstico individual. DOI: 10.1371/journal.pcbi.1002707.