PARTE VIII · La vida: células, herencia y evolución
78
Especies y parentesco: reconstruir el árbol de la vida
Cómo reconocer linajes y reconstruir una historia que no podemos observar directamente
En este capítulo
Dos aves pueden parecer casi idénticas y, sin embargo, no intercambiar genes porque cantan de manera distinta o se reproducen en estaciones diferentes. Un delfín y un tiburón comparten una forma hidrodinámica, aunque uno está más emparentado con otros mamíferos que con cualquier pez. Estos contrastes plantean dos preguntas relacionadas, pero no equivalentes: dónde trazamos los límites entre especies y cómo reconstruimos el parentesco entre los linajes.
La evolución no entrega etiquetas ni un árbol ya dibujado. Deja poblaciones que divergen, se cruzan a veces, se extinguen y conservan rastros desiguales en cuerpos, genomas, fósiles y distribuciones. La sistemática reúne esas señales para formular hipótesis históricas. Sus categorías son útiles precisamente porque pueden contrastarse y corregirse; no porque cada organismo encaje sin ambigüedad en una casilla eterna.
78.1. Conceptos de especie y sus límites#
En la vida cotidiana, una especie parece ser un tipo reconocible de organismo. La semejanza funciona bien en muchos casos, pero puede engañar. Individuos de una misma especie pueden cambiar mucho con la edad o el sexo, mientras linajes distintos pueden conservar una apariencia casi idéntica. La forma permite proponer límites; rara vez basta para justificarlos por sí sola.
El concepto biológico de especie pone el énfasis en poblaciones naturales cuyos miembros pueden reproducirse entre sí y que están reproductivamente aisladas de otros grupos. Su fuerza es mecanística: el intercambio de genes mantiene cierta cohesión dentro de un linaje y las barreras permiten que dos poblaciones acumulen diferencias. Su dominio es limitado. No puede aplicarse directamente a fósiles, resulta difícil de comprobar entre poblaciones geográficamente separadas y no describe bien a los organismos que se reproducen sin meiosis. Incluso especies reconocidas pueden hibridarse sin fusionarse por completo.
Otros conceptos hacen preguntas diferentes. El enfoque morfológico reconoce conjuntos distinguibles por rasgos; el ecológico atiende al modo particular de usar ambiente y recursos; el filogenético busca los linajes diagnósticos más pequeños; el evolutivo sigue poblaciones con identidad histórica propia. No son simplemente definiciones rivales para ganar una disputa verbal. Son criterios operativos que producen evidencia distinta sobre la separación de linajes. Una síntesis influyente propone entender una especie como un linaje de metapoblaciones que evoluciona por separado y tratar aislamiento, diferenciación ecológica, rasgos diagnósticos y monofilia como señales que pueden aparecer en momentos distintos de la divergencia. (de Queiroz, Species Concepts and Species Delimitation)
Por eso delimitar especies es una inferencia. Se comparan individuos y poblaciones, se mide flujo génico, se estudian apareamiento, ecología y distribución, y se construyen árboles a partir de múltiples caracteres. Cuantas más líneas independientes concuerdan, más sólida suele ser la delimitación. El resultado puede seguir siendo provisional si el muestreo es escaso o el proceso de separación está en curso.
La incertidumbre tiene consecuencias reales. Nombrar una especie puede cambiar prioridades de conservación, normas comerciales o estimaciones de biodiversidad. Eso no vuelve arbitraria la taxonomía, pero exige declarar el criterio, las muestras y las alternativas. El nombre resume una hipótesis sobre continuidad y separación; no crea por decreto la discontinuidad biológica.
78.2. Especiación, aislamiento e hibridación#
La especiación ocurre cuando poblaciones de un linaje adquieren suficiente independencia evolutiva para persistir como linajes separados. Una barrera geográfica puede iniciar el proceso: un río cambia de curso, una población coloniza una isla o un hábitat continuo se fragmenta. Al reducirse el flujo génico, mutación, deriva y selección actúan en contextos diferentes. La geografía facilita la divergencia, pero no la completa automáticamente.
Las barreras reproductivas pueden actuar antes o después de la fecundación. Entre las primeras están ocupar hábitats distintos, reproducirse en momentos diferentes, no reconocerse como pareja o tener estructuras incompatibles. Las posteriores reducen la viabilidad o fertilidad de la descendencia. Estas barreras suelen acumularse gradualmente. Dos poblaciones no pasan necesariamente de una mezcla completa a una separación absoluta en un solo paso.
También puede surgir divergencia sin una separación espacial total. Si grupos de una misma región usan recursos diferentes, se aparean preferentemente con individuos semejantes y la selección penaliza formas intermedias, el flujo génico puede disminuir. En plantas, la duplicación del número de juegos cromosómicos puede crear aislamiento reproductivo con rapidez. Ningún mecanismo único explica todos los casos, y clasificar la especiación sólo por geografía puede ocultar los procesos ecológicos y genéticos que mantienen la separación.
La hibridación muestra que los bordes son permeables. Dos linajes pueden producir descendencia en una zona de contacto y conservar, fuera de ella, combinaciones genéticas y ecológicas distintas. Los genes que cruzan esa frontera mediante reproducción repetida pueden incorporarse a otro linaje, proceso llamado introgresión. En ocasiones aportan variantes útiles; en otras reducen la aptitud o amenazan un linaje pequeño. La existencia de híbridos no demuestra por sí sola que las poblaciones sean una sola especie, del mismo modo que una barrera incompleta no demuestra que no haya divergencia.
La especiación es, por tanto, un proceso poblacional. No sucede porque un individuo «decida adaptarse» ni porque nazca un ejemplar extrañamente distinto. Requiere que diferencias heredables se acumulen y que la historia de reproducción y supervivencia reduzca la cohesión entre conjuntos de poblaciones.
78.3. Homología, analogía y comparación#
Para reconstruir parentesco no basta contar semejanzas. Primero hay que preguntar por qué existen. Dos estructuras son homólogas cuando proceden de una estructura presente en un ancestro común, aunque hoy cumplan funciones diferentes. El brazo humano, el ala de un murciélago y la aleta pectoral de una ballena conservan una organización ósea heredada de antepasados tetrápodos. Sus formas actuales se modificaron, pero la correspondencia entre piezas revela continuidad histórica.
La analogía describe semejanzas funcionales que no proceden, en ese aspecto, de un origen común reciente. Las alas de aves e insectos permiten volar, pero surgieron a partir de estructuras ancestrales distintas. Este tipo de semejanza aparece por evolución convergente cuando presiones comparables favorecen soluciones parecidas en linajes separados. La selección trabaja con materiales heredados: no diseña desde cero la forma perfecta para una función.
La distinción depende del nivel observado. El ala de un ave y la de un murciélago son análogas como superficies de vuelo desarrolladas independientemente, pero sus miembros anteriores son homólogos como extremidades de tetrápodos. «Homólogo» tampoco significa «idéntico» ni «útil para lo mismo». Define una relación histórica que se prueba comparando posición, desarrollo, estructura y, cuando es posible, genes implicados.
En filogenia interesan especialmente los caracteres derivados compartidos. Un rasgo ancestral muy extendido aporta poca resolución dentro de un grupo; uno nuevo que apareció en el ancestro de varios linajes puede unirlos en un clado, conjunto formado por un ancestro y todos sus descendientes. Pero el carácter debe evaluarse junto con otros: puede haberse perdido, aparecer de manera convergente o transferirse entre linajes.
Las secuencias de ADN y proteínas amplían la comparación a miles de posiciones. Tampoco hablan solas. Hay que reconocer qué secuencias descienden del mismo gen ancestral, modelar cambios múltiples y distinguir la historia de un gen de la historia de las especies. Duplicación génica, recombinación, hibridación, transferencia horizontal e incompleta separación de variantes ancestrales pueden hacer que genes distintos cuenten historias distintas.
78.4. Árboles filogenéticos y ancestros compartidos#
Un árbol filogenético representa una hipótesis sobre el orden de ramificación de linajes. Las puntas suelen corresponder a muestras o grupos estudiados; los nodos internos, a ancestros comunes inferidos; las ramas, a trayectorias de descendencia. Dos grupos son más cercanos si comparten un ancestro común más reciente, no si sus nombres aparecen uno junto al otro en la página.
El árbol puede rotarse alrededor de cualquier nodo sin alterar sus relaciones. Tampoco existe una escalera natural desde organismos «inferiores» hasta «superiores»: todas las puntas actuales han recorrido el mismo tiempo desde sus ancestros comunes. Una especie viva no suele ser el ancestro de otra especie viva; ambas descienden de poblaciones ancestrales. La longitud de las ramas sólo representa tiempo o cantidad de cambio cuando la leyenda lo declara. En un cladograma elemental puede ser mero espacio gráfico.
Para inferir el árbol se comparan caracteres y se buscan modelos que expliquen sus distribuciones. La parsimonia favorece, bajo ciertos supuestos, la historia con menos cambios; los métodos de máxima verosimilitud y bayesianos calculan qué árboles explican mejor los datos bajo modelos explícitos de evolución. Ningún algoritmo recupera el pasado sin supuestos. La selección de muestras, la alineación de secuencias, el modelo de cambio y los genes elegidos afectan el resultado.
La confianza se expresa comparando árboles plausibles y evaluando el apoyo de sus ramas, no ocultando la incertidumbre tras una línea nítida. Un nodo con apoyo alto puede estar bien resuelto dentro de los datos y modelos empleados; no garantiza que el muestreo sea completo. Nuevos fósiles o genomas pueden modificar una rama sin derribar todo el árbol.
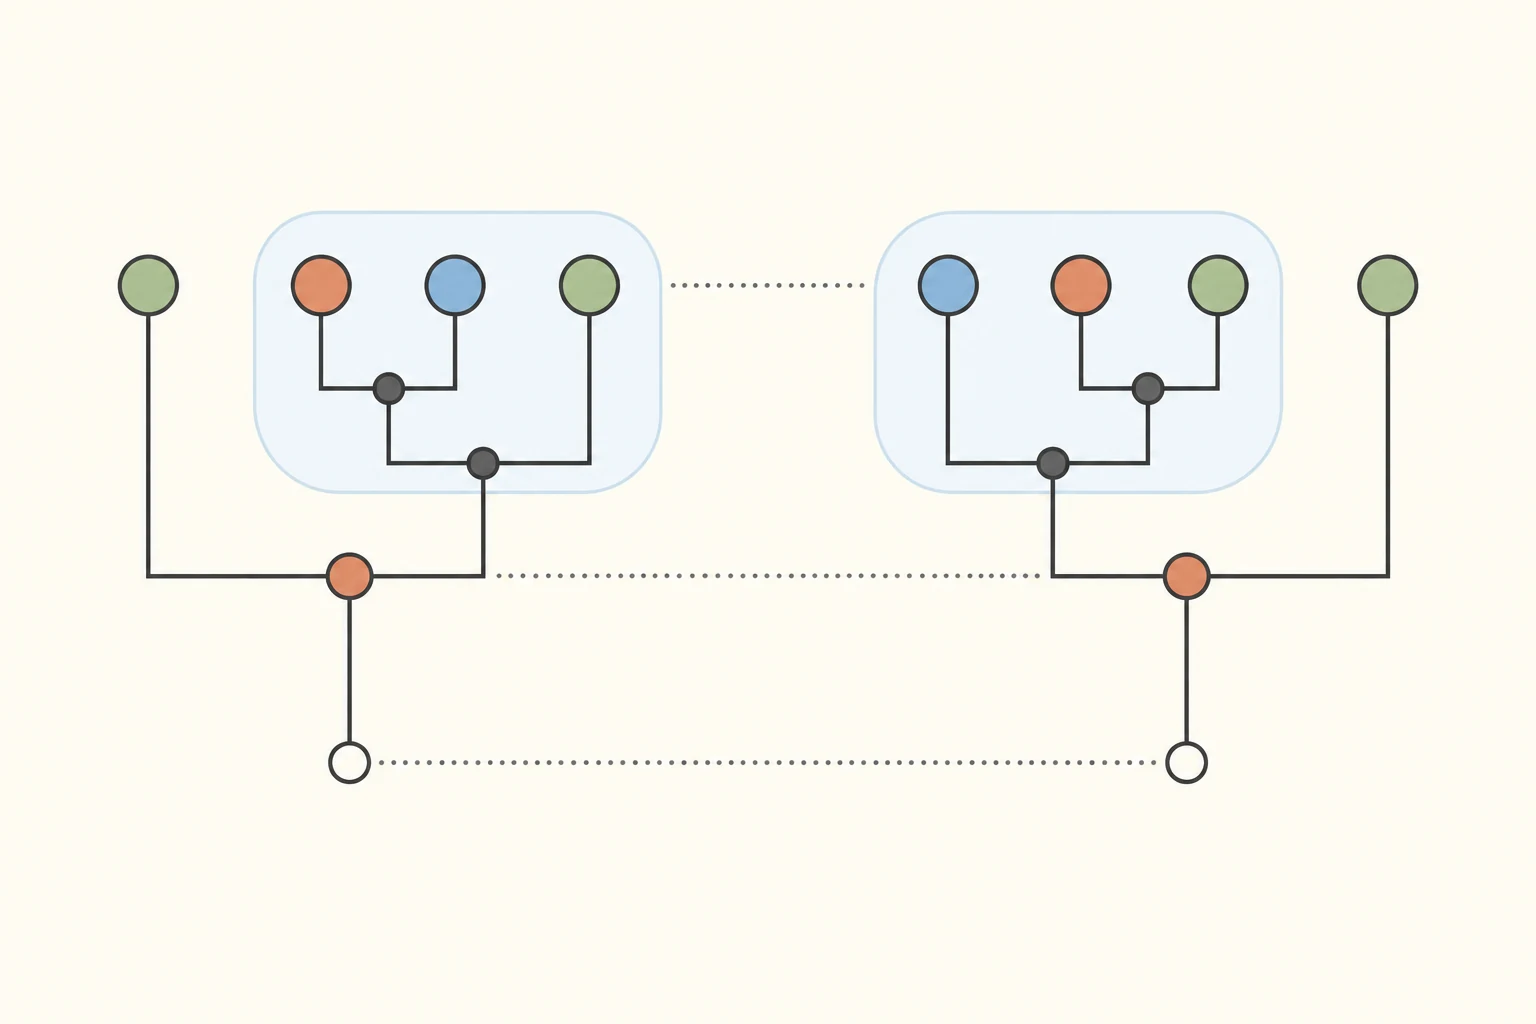
La posición izquierda-derecha puede cambiar; el patrón de nodos es la información histórica. La longitud de las ramas no representa tiempo en este esquema.
La imagen de un solo árbol tiene además límites biológicos. La hibridación y la transferencia horizontal de genes producen conexiones entre ramas; en microorganismos profundos, una red puede representar mejor ciertos episodios. El árbol sigue siendo indispensable para la descendencia vertical, siempre que no se confunda el modelo con una historia puramente bifurcada en todos sus detalles. (NCBI Bookshelf, Molecular Phylogenetics)
78.5. Evidencias fósiles, moleculares y biogeográficas#
Cada fuente ilumina una parte del pasado. Los fósiles sitúan organismos y rasgos en rocas cuya edad puede estimarse. Revelan combinaciones ya desaparecidas y establecen edades mínimas para linajes: si un fósil pertenece con seguridad a un clado, ese clado ya existía cuando se formó la roca. El registro es incompleto porque la conservación exige condiciones particulares y porque erosión, metamorfismo y falta de muestreo destruyen o esconden señales. La ausencia de un fósil rara vez demuestra por sí sola que un linaje no existía.
La anatomía y el desarrollo permiten reconocer correspondencias entre partes. Las moléculas aportan numerosos caracteres comparables incluso cuando la forma externa ha convergido. Los relojes moleculares estiman tiempos de divergencia a partir de cambios acumulados, pero no son cronómetros de ritmo constante. Necesitan modelos y calibraciones fósiles o geológicas; diferentes genes y linajes cambian a tasas distintas. La estimación final es un intervalo condicionado por esas decisiones.
La biogeografía pregunta dónde viven y vivieron los linajes. Una distribución puede reflejar la fragmentación de una masa continental, la dispersión a través de una barrera o extinciones posteriores. Islas oceánicas suelen reunir linajes emparentados con los continentes cercanos, modificados tras colonizaciones y radiaciones. Aun así, una semejanza geográfica no elige por sí sola entre escenarios: corrientes, capacidad de dispersión, edad de las islas y fósiles regionales importan.
La concordancia es más poderosa que cualquier señal aislada. Un fósil con caracteres diagnósticos, una edad estratigráfica coherente, secuencias que apoyan el mismo clado y una distribución compatible forman una cadena de inferencia. Si discrepan, la respuesta no es escoger la evidencia favorita: se revisan identificación, contaminación, modelos, calibraciones y la posibilidad de una historia reticulada.
78.6. Clasificación como representación revisable#
La clasificación biológica organiza diversidad mediante nombres y categorías. En la nomenclatura binomial, un nombre de especie combina género y epíteto específico; categorías más amplias agrupan linajes. La sistemática contemporánea procura que esos grupos reflejen parentesco. Un grupo monofilético contiene un ancestro y todos sus descendientes; excluir una rama descendiente produce un grupo parafilético, y reunir linajes de orígenes distintos por semejanza produce uno polifilético.
Revisar una clasificación no significa que «la ciencia cambió de opinión sin razón». Puede indicar que nuevas muestras, fósiles o genomas resolvieron una relación antes incierta. También puede reflejar desacuerdo sobre cuánto cambio merece un nombre distinto. La evidencia histórica y las reglas de nomenclatura resuelven problemas diferentes: una estima parentesco; las otras estabilizan la comunicación. Por eso a veces un cambio filogenético claro tarda en traducirse en nombres o se adoptan soluciones distintas entre códigos.
El árbol de la vida tampoco es un inventario terminado. Muchas especies no se han descrito, otras sólo se conocen por fragmentos y numerosos microorganismos se detectan mediante secuencias sin cultivarlos. Una clasificación responsable muestra qué agrupaciones están bien apoyadas, cuáles son convenciones prácticas y dónde el muestreo deja abierta la pregunta.
Especies y clados no son peldaños fijos, sino recortes justificables dentro de una historia continua. Reconocer esa continuidad no vuelve inútiles las categorías. Permite utilizarlas con mayor precisión: como modelos de linajes que se separan, conservan huellas de ancestros compartidos y a veces vuelven a intercambiar genes. El capítulo siguiente ampliará la escala temporal para examinar algunos de los cambios que alteraron las posibilidades mismas de la vida.
Preguntas de transferencia#
Dos poblaciones distintas producen algunos híbridos fértiles#
Ejemplo construido. Dos poblaciones de aves difieren en canto, hábitat y frecuencias génicas. En una franja estrecha producen híbridos fértiles, pero fuera de ella conservan sus diferencias. ¿La fertilidad demuestra que forman una sola especie?
Mostrar respuesta razonada
No por sí sola. La prueba muestra que la barrera reproductiva es incompleta, no cuánto flujo génico atraviesa la zona ni si basta para fusionar los linajes. Habría que medir apareamiento, supervivencia y reproducción de híbridos, anchura y estabilidad de la franja, y concordancia entre rasgos y genomas. Dos linajes pueden mantener independencia evolutiva pese a cierta introgresión.
El animal más parecido debe ser el pariente más cercano#
Ejemplo construido. Un vertebrado marino fósil tiene cuerpo fusiforme y aletas semejantes a las de un tiburón. Se lo clasifica como pez sólo por esa silueta. ¿Qué comparación falta?
Mostrar respuesta razonada
Falta distinguir convergencia de homología. Deben compararse la organización interna de las extremidades, cráneo, dientes y otros caracteres menos ligados a nadar, además de su posición estratigráfica. La forma hidrodinámica puede evolucionar de manera independiente porque reduce resistencia en el agua; no basta para establecer ascendencia cercana.
Las puntas contiguas son grupos hermanos#
Ejemplo construido. En un árbol, las especies A y D aparecen juntas en el margen después de rotar varias ramas. Un lector concluye que son las más emparentadas. ¿Cómo se comprueba la relación real?
Mostrar respuesta razonada
Se sigue cada rama hacia atrás hasta encontrar el ancestro común más reciente. El orden de las puntas puede cambiar al rotar nodos sin alterar la topología. A y D sólo son grupos hermanos si se unen entre sí antes de unirse con cualquier otra punta. La distancia sobre la página no es una medida genealógica.
Un fósil adelanta exactamente el origen de un linaje#
Ejemplo construido. Se identifica un fósil de 120 millones de años como miembro de un clado y se afirma que el grupo surgió exactamente entonces. ¿Qué permite concluir la evidencia?
Mostrar respuesta razonada
Permite fijar una edad mínima: el linaje ya existía hace 120 millones de años. Su origen pudo ser anterior y no haber dejado fósiles reconocidos. Para estimar la divergencia se combinarían más fósiles, contexto estratigráfico y modelos moleculares con intervalos de incertidumbre; la primera aparición conservada no equivale al nacimiento del grupo.
Fuentes y lecturas del capítulo#
de Queiroz, Kevin. Species Concepts and Species Delimitation. Distingue el concepto general de linaje de los criterios empleados para delimitar especies y explica por qué varias líneas de evidencia pueden concordar gradualmente. (Systematic Biology)
National Academies of Sciences, Engineering, and Medicine. Evaluating the Taxonomic Status of the Mexican Gray Wolf and the Red Wolf, capítulo 2. Discusión aplicada de conceptos de especie, aislamiento, hibridación y evidencia genómica. (NCBI Bookshelf)
Brown, T. A. Genomes 2, «Molecular Phylogenetics». Lectura de árboles, métodos de inferencia, incertidumbre y diferencia entre árboles de genes y de especies. (NCBI Bookshelf)
University of California Museum of Paleontology. Understanding Evolution: Trees, not ladders. Recurso institucional sobre ancestros comunes, grupos hermanos y errores habituales al leer filogenias. (recurso educativo)
National Research Council. Evolution and Diversity. Síntesis sobre sistemática, homología, convergencia, fósiles, moléculas y biogeografía como fuentes complementarias. (NCBI Bookshelf)