PARTE VIII · La vida: células, herencia y evolución
77
Evolución: mecanismos del cambio biológico
Cómo cambian las poblaciones sin anticipar su destino
En este capítulo
Una población puede cambiar entre generaciones sin que ningún individuo decida transformarse. Algunas variantes dejan más descendencia en un ambiente; otras aumentan o desaparecen por azar; individuos llegan desde otra población y aportan alelos; una mutación introduce una variante nueva. Todos son procesos evolutivos, pero no producen el mismo patrón ni permiten la misma explicación.
La evolución biológica es el cambio de características heredables de poblaciones a través de generaciones. En genética de poblaciones suele seguirse como cambio en frecuencias de alelos, aunque también importan rasgos cuantitativos, genomas y linajes. La definición excluye el ejercicio, el aprendizaje o la metamorfosis de un individuo. Esos cambios pueden influir en la supervivencia y reproducción, pero la evolución aparece cuando cambia la composición heredable de la población.
77.1. Variación, herencia y diferencias reproductivas#
La selección natural requiere tres relaciones. Los individuos difieren; al menos parte de esas diferencias se transmite; y las variantes se asocian con diferencias en supervivencia o reproducción. Ninguna basta sola. Si un rasgo varía pero no se hereda, la selección sobre él no produce una respuesta genética directa. Si se hereda pero no afecta cuánta descendencia llega a reproducirse, puede cambiar por otros procesos, pero no por selección de ese rasgo.
La aptitud biológica mide contribución relativa a generaciones posteriores en un ambiente. No equivale a fuerza, salud o longevidad. Un individuo que vive menos pero deja más descendientes fértiles puede contribuir más al futuro de la población. Además, la aptitud pertenece a una relación entre fenotipo y condiciones: una variante ventajosa bajo sequía puede resultar neutra o costosa cuando sobra agua.
En un modelo sencillo con dos alelos,
La variación disponible condiciona la respuesta. La selección no produce automáticamente la mutación necesaria. Actúa sobre variantes presentes y sobre nuevas variantes que surgen sin anticipar su utilidad. La recombinación reorganiza combinaciones. El desarrollo traduce genotipos y ambientes en fenotipos, por lo que la misma presión no genera siempre la misma respuesta.
77.2. Selección natural y selección sexual#
La selección natural ocurre cuando diferencias heredables se asocian de manera sistemática con diferencias reproductivas. Puede favorecer valores mayores o menores de un rasgo, eliminar extremos o mantener más de una variante. El resultado depende de cómo se distribuye la aptitud, no de una tendencia universal hacia mayor complejidad.
La selección direccional desplaza el promedio cuando un extremo deja más descendencia. La estabilizadora reduce extremos alrededor de un intervalo favorable. La disruptiva favorece extremos frente a valores intermedios bajo ciertas condiciones. Son descripciones de patrones; una misma población puede experimentar varios a la vez en rasgos distintos, y el patrón puede cambiar con el ambiente.
La selección sexual surge de diferencias en acceso a gametos y fecundaciones. Puede involucrar competencia, elección y conflicto, y producir rasgos costosos para la supervivencia que aumentan el éxito de apareamiento. No opera sólo en machos ni exige preferencias conscientes. El rol de cada sexo o tipo de apareamiento depende de inversión reproductiva, proporciones, cuidado y ecología.
Medir selección en la naturaleza requiere evitar una trampa. Que los supervivientes difieran de quienes murieron muestra selección fenotípica, pero no prueba que el rasgo medido fuera la causa ni que la respuesta se herede. El rasgo puede correlacionarse con otro factor causal. Para reconstruir el mecanismo se combinan seguimiento de individuos, parentesco, experimentos y mediciones ambientales.
La resistencia a antibióticos ilustra la lógica. El fármaco no enseña a cada bacteria a resistir. Variantes preexistentes o nuevas permiten que algunas sobrevivan y se multipliquen; transferencia horizontal puede mover genes de resistencia. El tratamiento cambia drásticamente las diferencias reproductivas. Reducir resistencia exige comprender dosis, duración, transmisión y costes, no imaginar que las bacterias persiguen una meta.
77.3. Deriva genética, flujo génico y mutación#
En una población finita, quienes dejan descendencia constituyen una muestra imperfecta de la generación anterior. Las frecuencias de alelos fluctúan por ese muestreo: es deriva genética. Su dirección no depende de que una variante mejore el ajuste al ambiente. El efecto es especialmente intenso cuando el tamaño efectivo de la población es pequeño.
El tamaño efectivo no es simplemente el censo. Resume cuántos individuos contribuyen genéticamente bajo un modelo. Desigualdad en número de descendientes, fluctuaciones demográficas y proporciones reproductivas pueden hacerlo mucho menor que el número observado. Una reducción brusca —un cuello de botella— puede eliminar variantes al azar. Una población fundada por pocos individuos puede comenzar con frecuencias muy distintas de la población de origen.
El flujo génico mueve variantes entre poblaciones mediante migración y reproducción, polen, esporas o transferencia genética. Suele reducir diferencias promedio entre poblaciones, pero también puede introducir variantes adaptativas o alelos mal ajustados al ambiente local. Migración física no garantiza flujo génico: el individuo debe contribuir a la descendencia. A la inversa, polen o gametos pueden mover genes sin que migre un adulto.
La mutación introduce estados nuevos de secuencia. Su frecuencia por generación suele ser baja en cada posición, pero poblaciones grandes contienen muchos genomas y, por tanto, numerosas mutaciones. La mayoría se pierde o permanece rara; algunas cambian por deriva y otras por selección. Decir que la mutación es aleatoria significa que su aparición no está orientada por la ventaja que proporcionaría. Las tasas y tipos de mutación sí dependen de mecanismos y exposiciones.
Estos procesos actúan juntos. Una variante ligeramente beneficiosa puede perderse cuando es rara; una dañina puede aumentar temporalmente por deriva; el flujo génico puede contrarrestar selección local; variantes ligadas pueden acompañar a una seleccionada. Inferir un mecanismo desde un solo patrón genómico exige comparar modelos demográficos y selectivos.
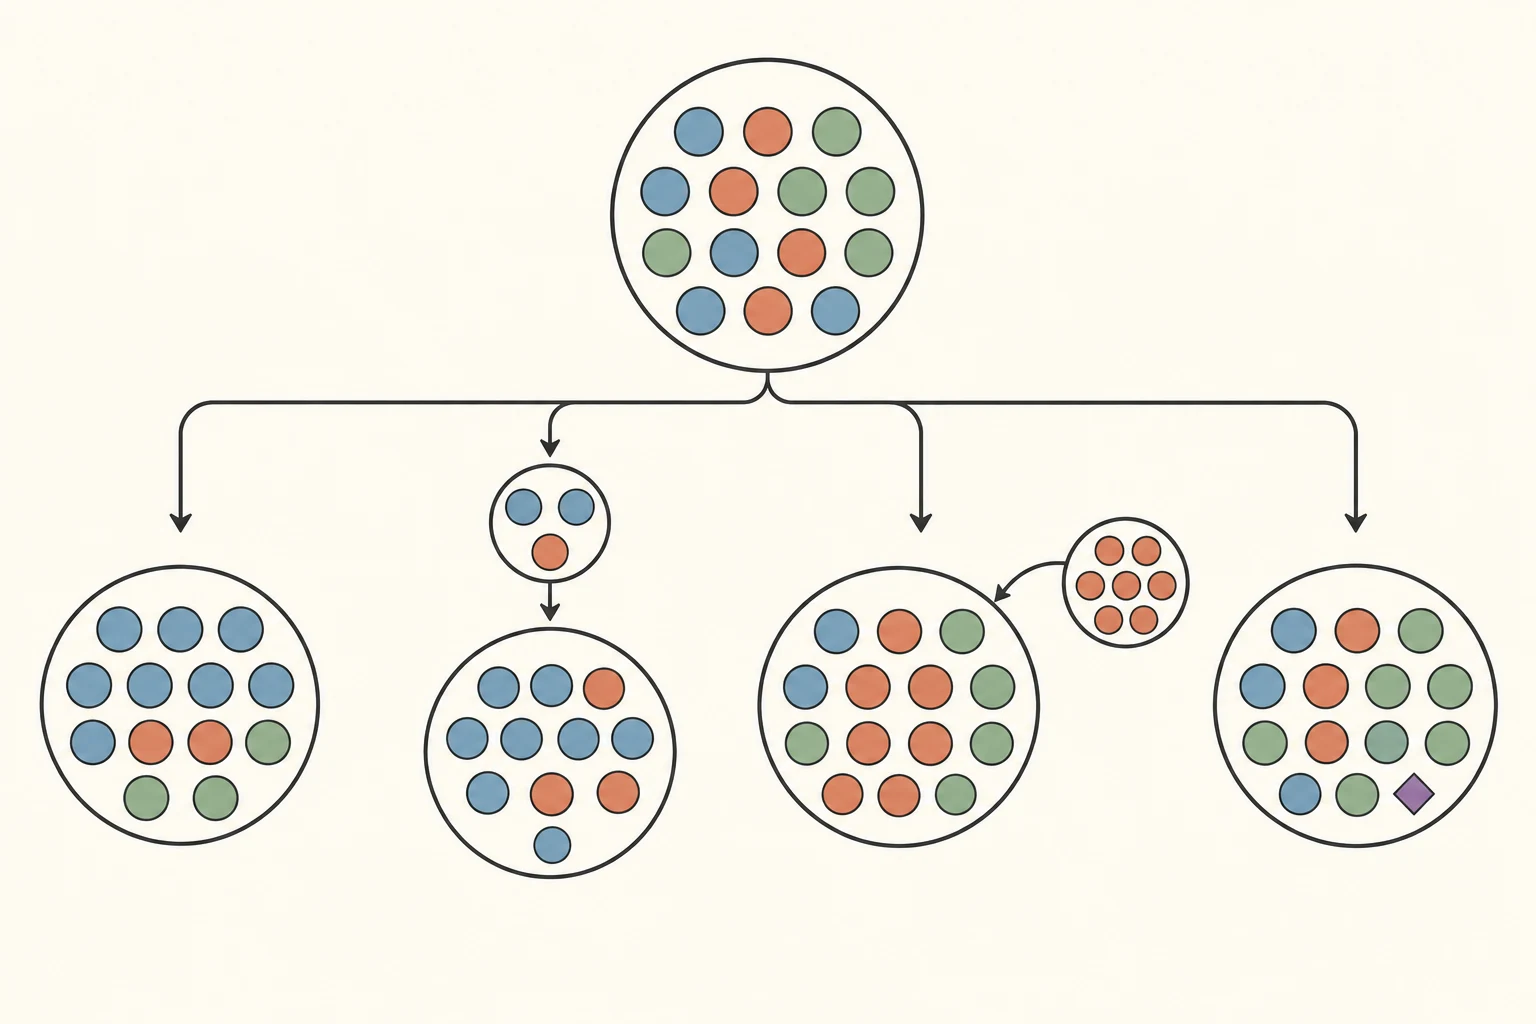
Los cuatro mecanismos alteran la composición heredable, pero sólo la selección produce de manera sistemática adaptación al ambiente considerado. En poblaciones reales operan simultáneamente.
77.4. Adaptación, restricciones y compromisos#
Una adaptación es un rasgo heredable que evolucionó porque aumentó la aptitud en ambientes pasados respecto de alternativas. No todo rasgo útil es una adaptación. Una estructura puede ser consecuencia física de otra, vestigio histórico o rasgo cooptado para una función nueva. Las plumas probablemente cumplieron funciones de aislamiento o exhibición antes de participar en el vuelo de algunos dinosaurios; reutilizar una estructura recibe el nombre de exaptación.
Demostrar adaptación requiere más que contar una historia plausible. Se comparan especies y ambientes, se mide desempeño, se manipulan rasgos, se reconstruye parentesco y se buscan cambios repetidos. Incluso entonces conviene distinguir función presente de origen histórico. Un rasgo puede ser útil ahora sin haber surgido por esa utilidad.
La selección trabaja con variación construida por el desarrollo y recibida de la historia. No puede escoger cualquier diseño concebible. Una mejora en una tarea puede empeorar otra: más pigmento protector cuesta materiales; una defensa contra patógenos puede aumentar daño inflamatorio; madurar pronto puede reducir crecimiento. Estos compromisos impiden maximizar todas las funciones a la vez.
El ambiente también varía en espacio y tiempo. Una adaptación local puede volverse desventaja si cambian clima, competidores o recursos. Y los organismos modifican su ambiente: raíces alteran suelo, castores cambian cursos de agua y microbios transforman condiciones químicas. Esa construcción de nicho cambia presiones futuras, pero no elimina la selección ni implica previsión.
La adaptación, por tanto, es relativa y provisional. «Más evolucionado» carece de sentido general: una bacteria contemporánea y un mamífero han recorrido el mismo tiempo desde su ancestro común, aunque sus formas y ritmos de cambio difieran.
77.5. Selección artificial y cambios observables#
En la selección artificial, seres humanos deciden qué individuos se reproducen según rasgos de interés. Darwin la utilizó como analogía para mostrar que pequeñas diferencias heredables, acumuladas durante generaciones, podían producir grandes cambios. La analogía tiene límite: la selección natural no posee criador, objetivo ni plan.
Cultivos, perros y palomas muestran respuestas intensas, pero también restricciones. Seleccionar un rasgo puede arrastrar variantes cercanas, reducir diversidad o producir respuestas correlacionadas. Cuando se agota variación relevante o aparecen costes, la respuesta se desacelera. La domesticación combina selección deliberada, selección no intencional y adaptación a ambientes humanos.
La evolución también se observa experimentalmente. Desde 1988, doce poblaciones de Escherichia coli iniciadas desde un ancestro común se mantienen en un ambiente definido. Muestras congeladas permiten competir poblaciones posteriores con sus antepasados. Las líneas aumentaron aptitud en ese ambiente, acumularon cambios diferentes y algunas desarrollaron tasas de mutación elevadas; una población adquirió capacidad de usar citrato en las condiciones del experimento. La repetición permite separar tendencias compartidas de contingencias históricas. (Lenski, 2017)
En poblaciones naturales pueden medirse cambios entre años o episodios ambientales, pero atribuirlos exige cuidado. Una variación del promedio puede deberse a supervivencia selectiva, plasticidad, inmigración o muestreo. Mostrar evolución requiere seguir la parte heredable a través de generaciones. El registro fósil y las comparaciones genómicas amplían la escala: no sustituyen la observación directa, sino que aportan otras cadenas de evidencia.
El cambio observable no siempre culmina en una especie nueva. Evolución incluye cambios dentro de poblaciones, mantenimiento de variantes y divergencia de linajes. Cómo delimitar especies y reconstruir esas divergencias pertenece al capítulo siguiente.
77.6. Ausencia de finalidad y errores de interpretación#
Decir que una estructura existe «para» cumplir una función puede ser abreviatura útil, pero oculta el proceso. Las alas no aparecieron porque una población necesitara volar. Variaciones de estructuras previas afectaron locomoción, aislamiento o exhibición; bajo ciertas condiciones, algunas dejaron más descendencia. La explicación va de variación heredable a diferencias reproductivas y cambio poblacional, no de una necesidad futura hacia el presente.
Los individuos tampoco evolucionan durante su vida. Pueden aclimatarse, aprender o cambiar fisiológicamente. Esos cambios influyen en qué individuos sobreviven y se reproducen, pero sólo hay evolución biológica cuando cambian características heredables de la población. Algunas respuestas plásticas son producto de evolución pasada; no por eso cada respuesta adquirida se hereda.
La selección no concede lo que una especie necesita ni garantiza supervivencia. Puede ser demasiado lenta frente a un cambio, carecer de variación adecuada o favorecer ventajas individuales que dañan la persistencia colectiva. Tampoco optimiza globalmente: actúa mediante diferencias locales y está condicionada por deriva, flujo génico, desarrollo e historia.
«Sobrevive el más apto» se vuelve circular si «apto» significa únicamente quien sobrevive. La investigación evita la circularidad formulando predicciones independientes: un rasgo medido debe mejorar una función bajo condiciones especificadas y anticipar éxito reproductivo. Después se comprueba si esa relación ocurre y si el rasgo se hereda.
Finalmente, evolución no equivale a progreso moral ni justifica cómo debería organizarse una sociedad. Una explicación de por qué un rasgo se extendió es descriptiva; no convierte el resultado en bueno, inevitable o deseable. La biología evolutiva gana precisión cuando renuncia a esas proyecciones y pregunta qué variantes cambiaron, por qué mecanismos, en qué población y bajo qué ambiente.
Preguntas de transferencia#
Una frecuencia cambió, pero el mecanismo sigue abierto#
Ejemplo construido. Tras un huracán, una población insular presenta mayor frecuencia de un alelo. El alelo se asocia con patas más largas. ¿Demuestra el cambio selección natural?
Mostrar respuesta razonada
No por sí solo. El huracán pudo favorecer ese fenotipo, pero también dejar una muestra azarosa o atraer inmigrantes. Habría que comparar supervivencia según rasgo, parentesco, tamaño poblacional, migración y repetición en otros episodios. El cambio de frecuencia demuestra evolución; su causa requiere evidencia adicional.
Resistencia no significa exposición dirigida#
Ejemplo construido. Después de aplicar un insecticida, aumenta una variante de resistencia. ¿El producto provocó la mutación porque los insectos la necesitaban?
Mostrar respuesta razonada
El insecticida puede causar daños o alterar tasas de mutación, pero el patrón adaptativo se explica si variantes resistentes ya existían o surgieron sin orientación y dejaron más descendencia durante la exposición. Muestras previas y experimentos de fluctuación pueden distinguir aparición anterior de inducción específica.
Un rasgo útil puede no haber evolucionado para su uso actual#
Ejemplo construido. Una estructura que hoy permite sujetarse a una superficie también regula temperatura en especies emparentadas. ¿Basta observar su utilidad presente para llamarla adaptación al agarre?
Mostrar respuesta razonada
No. Hay que reconstruir qué función se asoció con su origen y expansión. Comparaciones filogenéticas, fósiles y desempeño pueden mostrar que surgió bajo otra presión y fue cooptada después. La función actual y la explicación histórica son preguntas distintas.
Una población pequeña pierde un alelo beneficioso#
Ejemplo construido. Una mutación aumenta ligeramente la fecundidad, pero desaparece dos generaciones después en una población de diez reproductores. ¿Contradice la selección natural?
Mostrar respuesta razonada
No. Cuando una variante es rara y la población pequeña, el muestreo azaroso puede superar una ventaja débil. La selección modifica probabilidades, no garantiza el destino de cada alelo. Serían necesarios varios linajes o muchas generaciones para estimar el efecto medio.
Fuentes y lecturas del capítulo#
OpenStax. Biology 2e, capítulos sobre mecanismos de evolución y genética de poblaciones. Base para selección, deriva, flujo génico y adaptación. (microevolución; selección)
Charlesworth, Brian. «Effective population size and patterns of molecular evolution and variation». Nature Reviews Genetics 10, 195–205 (2009). Relación entre tamaño efectivo, deriva, selección y diversidad. (artículo)
Lenormand, Thomas. «Gene flow and the limits to natural selection». Trends in Ecology & Evolution 17, 183–189 (2002). Marco para entender cómo migración y selección local interactúan. (artículo)
Lenski, Richard E. «Experimental evolution and the dynamics of adaptation and genome evolution in microbial populations». The ISME Journal 11, 2181–2194 (2017). Diseño, resultados y límites inferenciales del experimento de evolución a largo plazo con E. coli. (artículo)
Endler, John A. Natural Selection in the Wild. Princeton University Press, 1986. Métodos y criterios para medir selección en poblaciones naturales sin confundir correlación fenotípica con mecanismo. (registro bibliográfico)