PARTE IX · Biodiversidad, ecología y biosfera
87
Comunidades y ecosistemas: redes de interdependencia
Cómo interacciones, flujos y perturbaciones organizan conjuntos vivos abiertos
En este capítulo
Un charco, un bosque y un arrecife contienen especies, pero no son simples listas. Una planta modifica luz y humedad; un herbívoro cambia qué plantas prosperan; un hongo transforma restos en compuestos disponibles; una crecida mueve organismos y sedimentos desde otro lugar. El efecto de cada participante depende de relaciones que pueden continuar fuera del límite que elegimos para estudiar.
Una comunidad reúne poblaciones de especies que coinciden e interactúan en un espacio y tiempo definidos. Un ecosistema incluye además el ambiente físico y los flujos de energía y materia que atraviesan componentes vivos y no vivos. La diferencia no crea dos realidades separadas. Permite formular preguntas distintas: quién convive y por qué, o cómo se mueve carbono, agua y energía a través del conjunto.
Estas unidades son abiertas y dinámicas. Reciben luz, agua, nutrientes, organismos y perturbaciones; exportan calor, materia y emigrantes. Su composición conserva huellas del orden de llegada y de episodios anteriores. Por eso dos lugares con clima parecido no deben contener necesariamente las mismas especies ni seguir una trayectoria única.
87.1. Nichos, hábitats y ensamblaje de comunidades#
El hábitat es el entorno donde vive un organismo o una población. El nicho ecológico describe las condiciones, recursos e interacciones que permiten su persistencia y la forma en que usa y modifica el ambiente. El hábitat puede compararse con una dirección; el nicho, con un conjunto de relaciones. La metáfora ayuda sólo al principio: ambos cambian con escala, etapa vital y presencia de otras especies.
El nicho fundamental reúne condiciones bajo las que una población podría mantener crecimiento sin competidores, depredadores u otras restricciones bióticas consideradas. El nicho realizado es la porción que ocupa bajo interacciones y barreras presentes. La relación no es siempre de simple reducción. Un mutualista puede permitir vivir donde el organismo aislado no persistiría, y un depredador puede impedir que un competidor excluya a otro.
Una comunidad se ensambla mediante filtros sucesivos. Primero debe existir un conjunto regional de especies capaces de llegar. Dispersión, barreras e historia determinan cuál lo consigue. Después, temperatura, humedad, química y perturbación permiten que algunas establezcan poblaciones. Interacciones facilitan o impiden la persistencia posterior. Estos filtros no actúan una sola vez ni en orden rígido.
El orden de llegada puede producir efectos de prioridad. Una especie que ocupa espacio temprano modifica recursos o enemigos y cambia el éxito de quienes llegan después. En otro orden, el resultado puede ser diferente aun con la misma lista regional. La contingencia histórica no significa que cualquier comunidad sea posible: clima, rasgos y relaciones restringen el conjunto. La revisión de Fukami muestra cómo nichos, dispersión y prioridad pueden generar estados alternativos o transitorios. (Fukami, 2015)
Las interacciones tampoco caben siempre en signos fijos. Una planta que da sombra puede perjudicar a una vecina en clima húmedo y protegerla de desecación en clima seco. Un consumidor puede reducir a su presa y, al mismo tiempo, liberar recursos para supervivientes. «Mutualismo», «competencia» y «depredación» resumen efectos netos bajo condiciones; no garantizan la misma magnitud o signo en todo momento.
La composición se describe mediante riqueza de especies, abundancias relativas y rasgos. Dos comunidades con diez especies pueden diferir si una está dominada por una sola o si todas tienen abundancias semejantes. También pueden compartir riqueza pero no identidad. Medidas distintas responden preguntas distintas y no deben comprimirse en un único número de «salud».
La abundancia tampoco equivale a influencia. Una especie dominante aporta gran biomasa, cobertura o número; una especie clave produce un efecto desproporcionado respecto de su abundancia. Un coral constructor o un árbol puede crear estructura para muchos organismos; un depredador relativamente raro puede impedir que un consumidor domine. Retirar una especie y medir respuestas ofrece evidencia más fuerte que asignar el término por intuición, pero las manipulaciones deben considerar escalas y efectos transitorios.
87.2. Redes tróficas y flujos de energía#
Una cadena alimentaria sigue una ruta desde productores hacia consumidores. Una red trófica reconoce que cada especie suele tener varias fuentes y varios consumidores. Omnívoros comen en más de un nivel; etapas juveniles y adultas ocupan posiciones distintas; detritos conectan casi todos los componentes con descomponedores. Las flechas deben definirse: en ecología suelen apuntar desde el recurso hacia quien recibe materia y energía.
Los productores primarios incorporan energía mediante fotosíntesis o quimiosíntesis y fijan carbono inorgánico en materia orgánica. Los consumidores obtienen parte de esa materia al alimentarse. En cada transformación, una fracción no se ingiere, otra no se asimila y mucha energía química se utiliza en mantenimiento y se disipa como calor. Sólo la porción incorporada a nueva biomasa queda disponible para crecimiento, reproducción y consumidores posteriores.
La eficiencia de transferencia entre niveles puede escribirse como:
La energía fluye: entra desde una fuente, se transforma y termina dispersándose como calor que ya no puede sostener el mismo trabajo biológico. La materia circula: átomos de carbono, nitrógeno y fósforo pasan entre organismos y reservorios, aunque algunos quedan retenidos durante tiempos largos o salen del límite estudiado. Decir que «la energía se recicla» confunde estas trayectorias.
Las redes también transmiten efectos indirectos. Si un depredador reduce herbívoros, puede aumentar vegetación; si cambia sólo su conducta, las presas pueden abandonar zonas de alimentación y producir un efecto semejante. Una cascada trófica no implica que cada eslabón responda igual. Refugios, omnivoría y rutas alternativas amortiguan o redirigen el cambio.
Una red dibujada registra posibilidad o presencia de interacción, no necesariamente su fuerza. Dos enlaces pueden diferir por órdenes de magnitud en biomasa transferida y variar con la estación. Agrupar especies en «productores» o «consumidores» aclara el flujo general, pero puede ocultar que una especie cambia de dieta durante su vida. Para predecir una perturbación hacen falta dirección, magnitud, frecuencia y respuesta de cada enlace; contar conexiones por sí solo no basta.
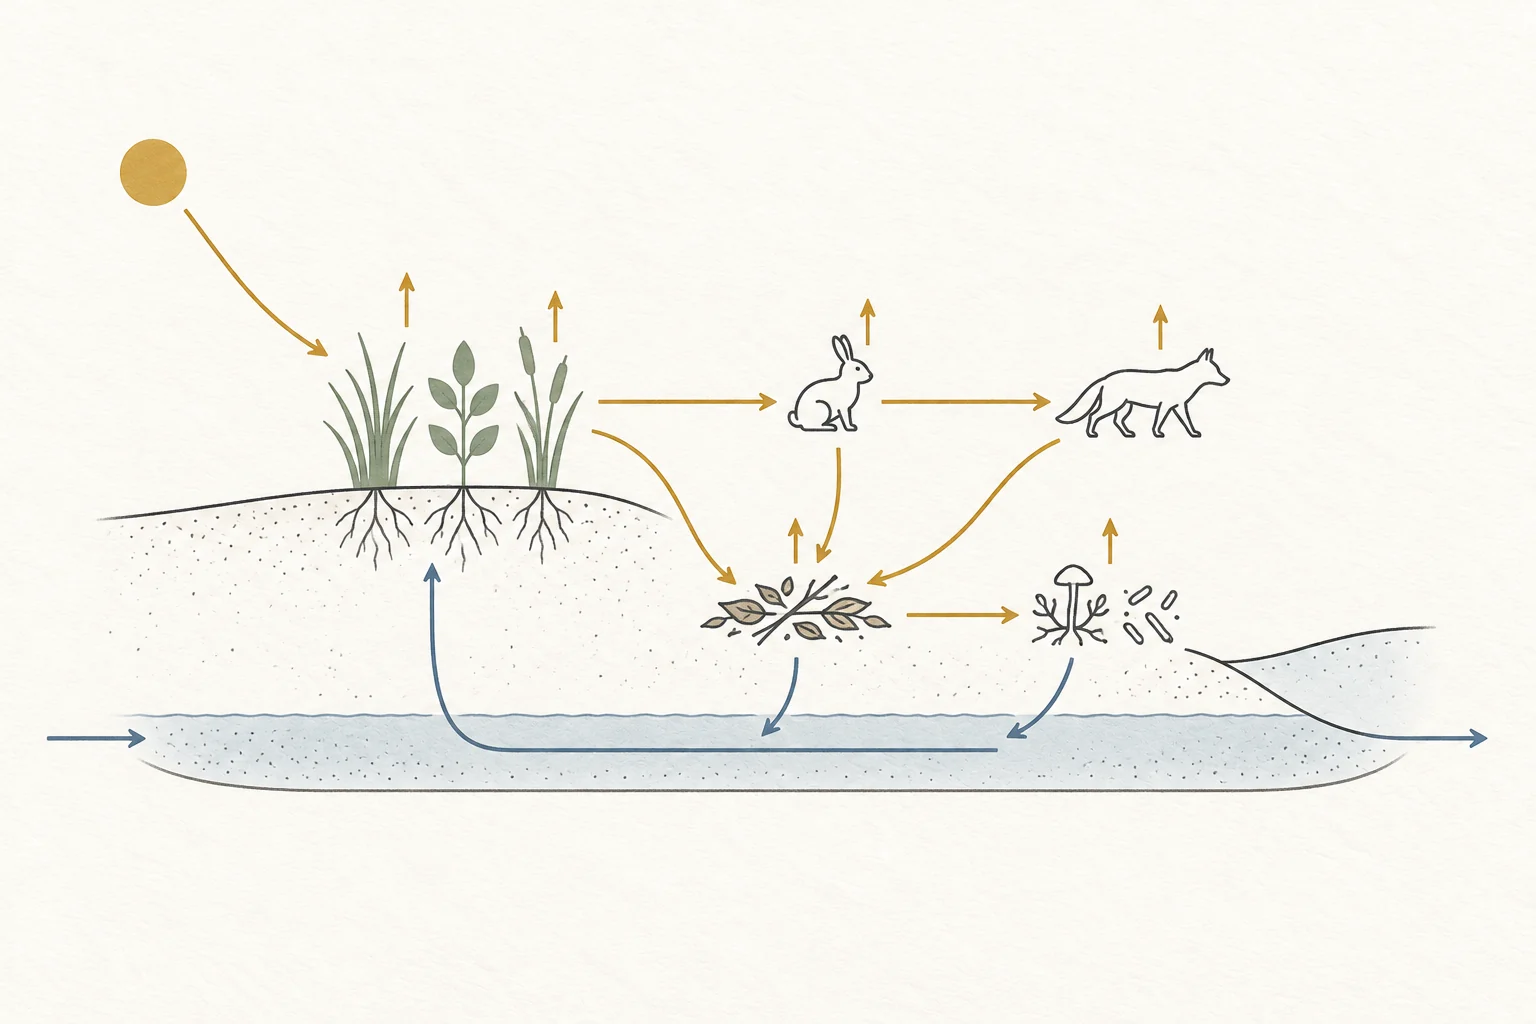
Clave de lectura. La energía entra, atraviesa varias rutas y se disipa; la materia puede volver desde restos y descomponedores a reservorios que alimentan nueva producción. El sistema también intercambia materia con su entorno. Las flechas indican procesos, no magnitudes ni una red completa.
OpenStax desarrolla redes tróficas, producción y eficiencias, y muestra por qué pirámides de número o biomasa pueden invertirse aunque la de energía no lo haga. (OpenStax, flujo de energía en ecosistemas)
87.3. Productividad y descomposición#
La producción primaria bruta (PPB) es la tasa total a la que productores fijan energía en compuestos orgánicos. Parte se consume en su respiración. La producción primaria neta (PPN) es lo que queda incorporado como nueva biomasa por unidad de área y tiempo:
La productividad no es biomasa. Un pastizal puede producir mucho tejido y conservar poca biomasa en un instante porque el consumo y recambio son rápidos. Un bosque puede acumular gran biomasa leñosa con una tasa actual moderada. Comparar ecosistemas exige unidades de flujo, intervalo y área; una imagen satelital de verdor es un indicador que debe calibrarse, no una medición directa de toda fotosíntesis.
Luz, agua, temperatura y nutrientes limitan producción en combinaciones distintas. Añadir nitrógeno eleva crecimiento sólo si es limitante y no aparece otra restricción. En lagos y océanos, fósforo, nitrógeno, hierro, mezcla y luz pueden cambiar el resultado. Hablar del «factor limitante» como una propiedad permanente ignora que los límites cambian con estación y escala.
La descomposición procesa tejido muerto, excrementos y moléculas disueltas. Fragmentadores aumentan superficie; hongos y bacterias liberan enzimas; consumidores de microbios enlazan la vía detrítica con el resto de la red. Temperatura y humedad influyen, pero la química del sustrato y el acceso al oxígeno pueden frenar el proceso. Una hoja rica en compuestos solubles no sigue el ritmo de madera lignificada.
Producción y descomposición juntas determinan acumulación. Si entra materia orgánica más rápido de lo que se consume y respira, aumenta el reservorio; si ocurre lo contrario, disminuye. Esto no puede inferirse de una sola tasa. La NASA define PPB y PPN para validar productos terrestres y señala que la PPN es la fijación restante después de respiración vegetal, no el balance total del ecosistema. (NASA, validación de producción primaria)
El intercambio neto de carbono de un ecosistema incorpora también la respiración heterótrofa. Un año con alta PPN puede coincidir con liberación neta si calor o sequía aceleran descomposición de reservas antiguas. A la inversa, menor producción no implica pérdida inmediata si la respiración disminuye todavía más. Cámaras, cosechas, torres de flujo y satélites observan piezas distintas del balance; reconciliarlas exige igualar área, periodo y reservorios incluidos.
87.4. Sucesión, perturbaciones y cambios de estado#
Una perturbación altera recursos, sustrato, organismos o condiciones en una escala definida. Un incendio puede ser intenso para el sotobosque y dejar árboles vivos; una caída de árbol abre un claro pequeño; un huracán reorganiza kilómetros. Frecuencia, extensión, duración e intensidad importan tanto como el tipo.
Después, la composición cambia mediante sucesión. En un sustrato sin suelo desarrollado, colonización y formación de suelo forman parte de la sucesión primaria. Cuando suelo y propágulos persisten, la secundaria puede avanzar con mayor rapidez. Llegada, rebrote, facilitación, competencia y consumo determinan qué especies aparecen y cuánto permanecen.
La sucesión no es una escalera inevitable hacia una comunidad final estable. Sequías, herbivoría, nuevos incendios y llegada de especies redirigen la trayectoria. El orden inicial produce prioridad; un árbol longevo conserva efectos durante décadas. Incluso sin perturbación visible, mortalidad y reemplazo crean mosaicos de etapas dentro de un paisaje.
La resistencia mide cuánto cambia un sistema ante una perturbación; la recuperación o resiliencia en sentido operativo, cuánto y con qué rapidez retorna una variable. Un ecosistema puede conservar productividad mientras cambia de especies, o recuperar composición sin recuperar un flujo. Siempre debe indicarse qué variable, referencia y plazo definen «recuperado».
En algunos sistemas, retroalimentaciones mantienen configuraciones alternativas. Vegetación clara puede favorecer agua transparente en un lago, mientras pérdida de plantas y resuspensión de sedimento sostienen turbidez. Cruzado un umbral, revertir la presión no garantiza seguir el camino inverso. Los cambios de régimen son una hipótesis exigente: una transición abrupta no basta para demostrar estados alternativos; hay que identificar mecanismos de retroalimentación y dependencia de trayectoria. (Folke y colaboradores, 2004)
87.5. Diversidad, estabilidad y límites de generalización#
«Diversidad» puede significar riqueza, equidad de abundancias, variedad genética, filogenética o funcional. «Estabilidad» puede significar poca variación, resistencia, velocidad de recuperación o persistencia. Afirmar que una causa la otra sin especificar ambas produce una proposición imposible de evaluar.
Hay mecanismos por los que mayor diversidad estabiliza una función agregada. Si especies responden de modo distinto a sequía y humedad, la caída de una puede coincidir con aumento de otra. Una comunidad con más especies tiene también mayor probabilidad de incluir una con un rasgo importante. Complementariedad en el uso de recursos puede elevar producción. Estos mecanismos no garantizan que cada población sea estable: la biomasa total puede variar poco mientras sus componentes fluctúan.
También existen límites. Añadir conexiones fuertes y desestabilizadoras puede amplificar cambios en ciertos modelos; una especie introducida puede aumentar riqueza local a corto plazo y degradar funciones; muchas especies raras pueden aportar poca redundancia ante una perturbación concreta. Identidad, abundancia, rasgos y estructura de interacciones importan junto al número.
La evidencia depende del diseño. Experimentos de pastizal que manipulan riqueza ofrecen control, pero no contienen toda la historia y escala de un bosque. Comparaciones observacionales abarcan sistemas reales, aunque productividad y diversidad pueden responder a la misma fertilidad y producir correlación. Replicar mecanismos en sistemas distintos permite generalizar con condiciones, no convertir una tendencia media en ley.
Una síntesis de la relación diversidad–estabilidad destaca que varias definiciones producen relaciones diferentes y que la compensación entre respuestas puede estabilizar funciones agregadas. (Nature Education, diversidad y estabilidad) Estudios posteriores separan compensación biológica y promedio estadístico y muestran que incluso una relación positiva admite mecanismos distintos. (Wang y colaboradores, 2023)
87.6. Escalas espaciales y conexiones entre ecosistemas#
El límite de un ecosistema es una decisión analítica. Una cuenca recoge agua y sedimentos de laderas; una costa recibe nutrientes fluviales; un bosque incorpora insectos emergidos de un arroyo. Lo que parece producción local puede depender de una subvención espacial: materia, energía u organismos generados en otro sistema.
Las conexiones pueden sostener o desestabilizar. Hojarasca terrestre alimenta redes de arroyos; peces migratorios llevan nutrientes entre mar y ríos; aves transportan semillas. A la vez, contaminantes, patógenos e incendios cruzan límites. Aumentar conectividad facilita recolonización después de pérdidas locales, pero también sincroniza perturbaciones o propaga invasores.
La escala cambia el patrón. Una especie puede declinar en parcelas y aumentar regionalmente si coloniza otros sitios. La riqueza local puede crecer mientras comunidades distantes se vuelven más parecidas y disminuye la diversidad regional. Medir sólo un punto o un año confunde variación natural, tendencia y desplazamiento.
La relación especie–área ilustra ese problema. Al ampliar la superficie suelen aparecer más especies porque se incluyen más individuos, ambientes y poblaciones raras. Por eso dos inventarios sólo son comparables si el esfuerzo y el área se consideran. Fragmentar una superficie no equivale necesariamente a muestrear una menor: cambia bordes, aislamiento y continuidad. El patrón estadístico orienta preguntas, pero no sustituye estudiar movimiento, extinción local y calidad del hábitat.
El paisaje puede representarse como parches conectados por una matriz de distinta permeabilidad. Pero para un ave, un río o un hongo, los mismos bordes no significan lo mismo. La conectividad estructural —distancia y continuidad visibles— difiere de la funcional, que mide movimiento efectivo. Un corredor dibujado en mapa no ayuda si el organismo no lo usa o si aumenta mortalidad.
Por eso las intervenciones locales requieren balances externos. Proteger un estuario sin controlar sedimentos de la cuenca deja fuera una causa decisiva; restaurar un sitio sin fuente de colonizadores limita recuperación. La planificación integrada tierra–mar muestra cómo procesos y amenazas atraviesan límites administrativos. (Álvarez-Romero y colaboradores, 2011)
Preguntas de transferencia#
Compartir hábitat significa ocupar el mismo nicho#
Ejemplo construido. Dos aves anidan en el mismo bosque. ¿Se sigue que compiten por el mismo nicho?
Mostrar respuesta razonada
No. Pueden usar alturas, alimentos, horarios o lugares de nido distintos. Incluso compartir un recurso no produce competencia si no es limitante. Para demostrar solapamiento relevante habría que medir uso, disponibilidad y efecto de una especie sobre desempeño de la otra. Hábitat común localiza la interacción posible; no define toda la relación.
La energía vuelve a las plantas mediante descomponedores#
Ejemplo construido. Un diagrama muestra hojas, herbívoros y hongos en un círculo cerrado de «energía». ¿Qué debería corregirse?
Mostrar respuesta razonada
Los descomponedores devuelven elementos en formas que productores pueden reutilizar, pero durante cada transformación parte de la energía química se disipa como calor. Nueva producción requiere entrada de energía luminosa o química. La materia puede circular dentro del límite; la energía lo atraviesa. Las flechas deben diferenciar ambos procesos.
Más biomasa significa más productividad#
Ejemplo construido. Un bosque contiene más biomasa que un pastizal. ¿Demuestra que produce biomasa más rápido cada año?
Mostrar respuesta razonada
No. Biomasa es una cantidad acumulada en un momento; productividad es una tasa. Tejido leñoso longevo puede sostener gran reserva aunque la producción anual sea moderada. Un pastizal con consumo y recambio rápidos puede mantener poca biomasa y producir mucho. Hacen falta cambios por área y tiempo, además de pérdidas.
Después de un incendio el ecosistema volverá al estado previo#
Ejemplo construido. Un bosque se quemó, pero el clima regional no cambió. ¿Puede predecirse recuperación completa?
Mostrar respuesta razonada
No. Importan intensidad, suelo, semillas, rebrote, herbívoros, invasiones y perturbaciones posteriores. El orden de llegada puede desviar la trayectoria y algunas retroalimentaciones mantener otro estado. «Recuperación» debe especificar si se refiere a cobertura, especies, productividad o almacenamiento de carbono y en qué plazo.
Mayor número de especies garantiza estabilidad#
Ejemplo construido. Una parcela tiene el doble de especies que otra. ¿Será necesariamente más resistente a la sequía?
Mostrar respuesta razonada
No. Depende de qué especies y rasgos estén presentes, sus abundancias, interacciones y la variable de estabilidad. Diversidad puede estabilizar producción si las respuestas se compensan, pero no garantiza resistencia de cada población. Habría que medir respuesta y recuperación bajo sequías comparables y controlar otras diferencias ambientales.
Fuentes y lecturas del capítulo#
OpenStax. Biology 2e, Community Ecology. Introducción a nichos, interacciones, estructura comunitaria y sucesión. (sección 45.6)
OpenStax. Biology 2e, Energy Flow through Ecosystems. Base para redes tróficas, productividad, eficiencias y pirámides ecológicas. (sección 46.2)
Fukami, T. Historical Contingency in Community Assembly: Integrating Niches, Species Pools, and Priority Effects. Revisión de ensamblaje, orden de llegada y estados alternativos. (Annual Review of Ecology, Evolution, and Systematics, 2015)
Folke, C. y colaboradores. Regime Shifts, Resilience, and Biodiversity in Ecosystem Management. Marco para retroalimentaciones, resiliencia y cambios de régimen. (Annual Review of Ecology, Evolution, and Systematics, 2004)
NASA Land Product Validation. Gross and Net Primary Production. Definiciones operativas de producción primaria bruta y neta y su relación con flujos de carbono. (recurso)
Wang, S. y colaboradores. Biodiversity stabilizes plant communities through statistical-averaging effects rather than compensatory dynamics. Separa mecanismos posibles de estabilidad temporal agregada. (Nature Communications, 2023)
Álvarez-Romero, J. G. y colaboradores. Integrated Land-Sea Conservation Planning: The Missing Links. Revisión de conexiones, amenazas y planificación entre sistemas terrestres y marinos. (Annual Review of Ecology, Evolution, and Systematics, 2011)
Nature Education. Biodiversity and Ecosystem Stability. Síntesis de definiciones y mecanismos que relacionan diversidad con estabilidad. (Scitable)