PARTE X · El cuerpo humano: organización y regulación
96
Inmunidad: reconocer, responder y recordar
Defender tejidos exige detectar peligro sin convertir cada diferencia en un enemigo
En este capítulo
El sistema inmunitario resuelve un problema difícil: debe reaccionar pronto ante ciertos cambios, ignorar muchos otros y detenerse cuando la amenaza ha pasado. No posee una lista simple de «propio» y «extraño». Convive con alimentos, microbiota, células envejecidas y materiales ambientales; al mismo tiempo detecta daño, invasión y alteraciones internas.
La defensa ocurre en tejidos, sangre, linfa y órganos linfoides. Incluye barreras que evitan el ingreso, respuestas innatas rápidas, respuestas adaptativas que expanden clones específicos y mecanismos que limitan el daño. Estas capas se comunican. Separarlas ayuda a estudiar, pero ninguna actúa aislada.
Este capítulo sigue una respuesta a través del tiempo. Así se evita imaginar la inmunidad como un ejército siempre conveniente: proteger implica también tolerar, reparar y volver a un estado compatible con la función del tejido.
96.1. Barreras y defensa innata#
La piel y los epitelios respiratorio, digestivo y urogenital son fronteras activas. Uniones entre células, moco, cilios, flujo, pH y moléculas antimicrobianas dificultan entrada o permanencia. La microbiota ocupa nichos y transforma recursos, aunque su composición no garantiza por sí sola salud. La barrera no es una pared inmóvil: renueva células, secreta sustancias y conversa con el tejido subyacente.
Si una barrera se altera, células residentes reconocen patrones moleculares asociados con microbios o daño. Sus receptores no identifican cada especie con precisión ilimitada; detectan rasgos conservados y señales de contexto. Macrófagos, células dendríticas, mastocitos, neutrófilos y proteínas del complemento contribuyen de formas distintas. «Innato» no significa rudimentario ni idéntico en cada exposición.
El complemento es una red de proteínas plasmáticas que puede activarse por varias rutas. Sus productos marcan superficies para facilitar fagocitosis, reclutan células y, en ciertos casos, lesionan membranas. Como esta cascada se amplifica, reguladores solubles y de superficie protegen células del huésped. La potencia sin localización sería peligrosa.
Los fagocitos engloban partículas y las confinan en compartimentos donde enzimas y especies reactivas ayudan a destruirlas. Esa capacidad tampoco distingue de manera perfecta: depende de receptores, anticuerpos, complemento y señales del entorno. Los neutrófilos llegan rápido y viven poco; los macrófagos residentes vigilan, eliminan restos y coordinan reparación.
La defensa innata cambia con exposiciones previas mediante reprogramación celular y tisular, pero no genera la diversidad clonal y memoria altamente específica propias de linfocitos. La distinción entre innata y adaptativa describe mecanismos, no dos turnos que nunca se solapan.
96.2. Inflamación y comunicación celular#
La inflamación es una respuesta coordinada a infección, lesión u otras alteraciones. Mediadores locales modifican diámetro y permeabilidad vascular, atraen leucocitos y cambian metabolismo del tejido. Enrojecimiento, calor, edema y dolor reflejan parte de esos cambios; no indican por sí solos la causa.
Citocinas y quimiocinas son señales, no etiquetas de bondad o daño. Una misma molécula puede producir efectos diferentes según concentración, receptor, tejido y momento. Algunas favorecen reclutamiento o activación; otras limitan la respuesta y ayudan a resolverla. Las células también se comunican por contacto y por productos metabólicos.
La inflamación aguda puede contener una amenaza y crear condiciones para reparar. Su resolución es activa: cesa reclutamiento, se eliminan células muertas, cambian mediadores y macrófagos procesan restos. Si persiste el estímulo o falla la regulación, una respuesta crónica puede remodelar tejido y reducir función. «Antiinflamatorio» no equivale automáticamente a saludable: suprimir demasiado pronto también puede impedir defensa o reparación.
La fiebre es una regulación sistémica de la temperatura desencadenada por mediadores que cambian el punto de ajuste hipotalámico. Puede apoyar ciertas funciones defensivas y cuesta energía. No es lo mismo que hipertermia por incapacidad de disipar calor. La gravedad depende de temperatura, duración, edad, contexto y síntomas asociados; una explicación fisiológica no sustituye evaluación clínica.
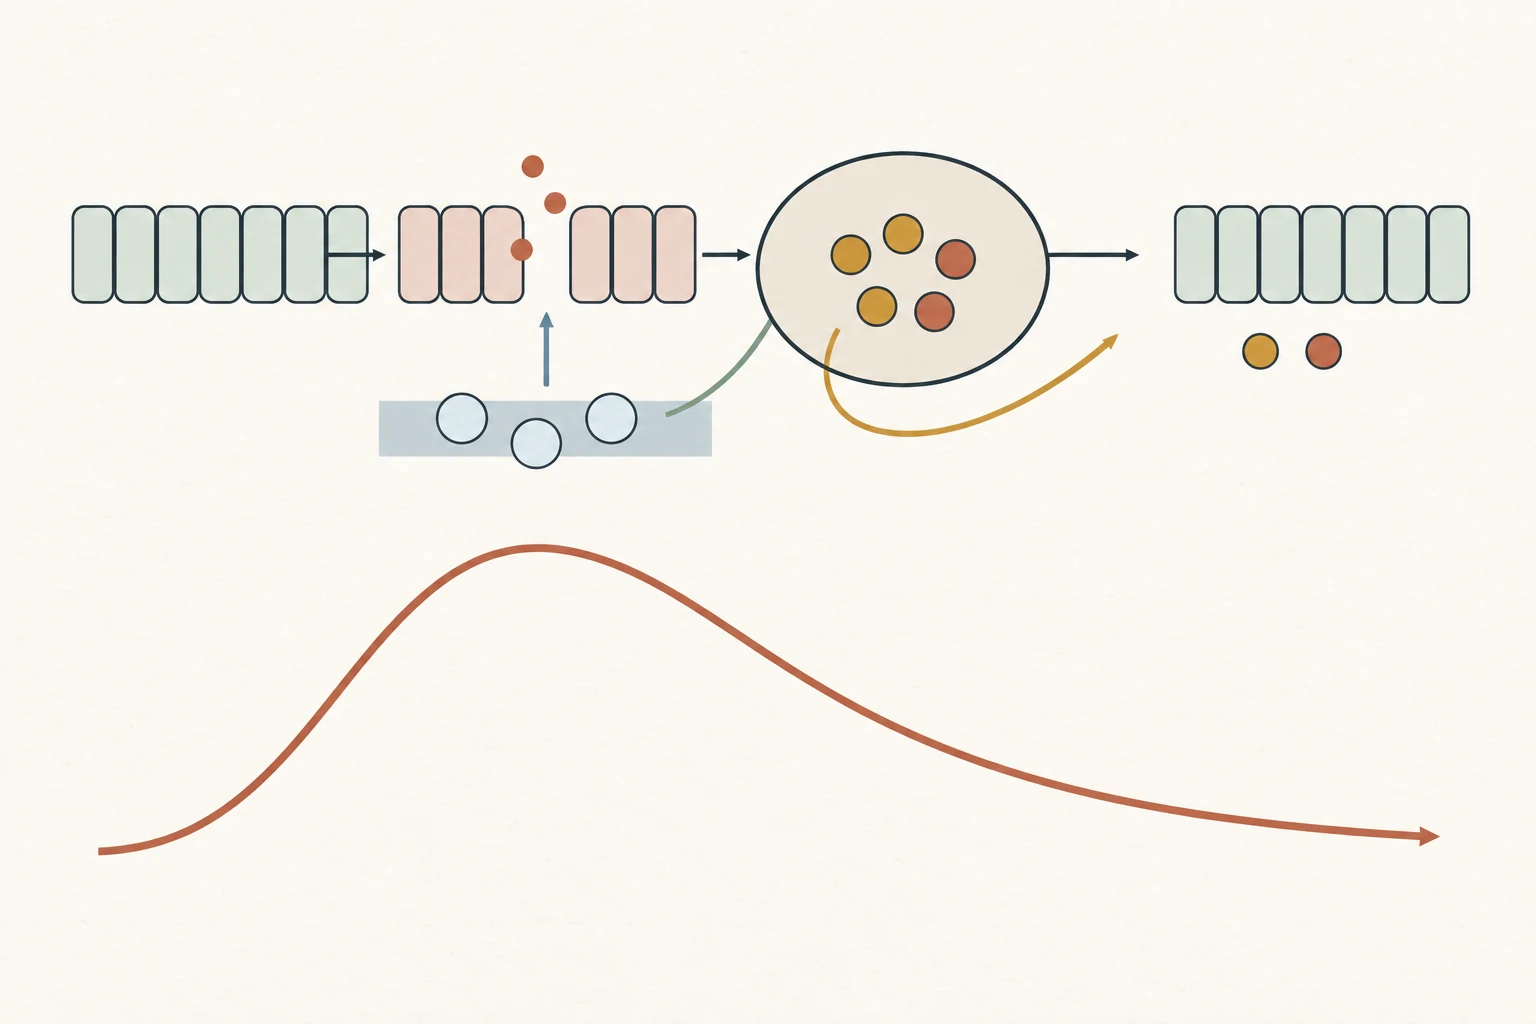
Clave de lectura. La defensa empieza en una barrera, se amplifica mediante señales locales y puede reclutar una respuesta clonal. Resolver no es simplemente apagar: exige retirar células y señales, reparar el tejido y conservar memoria sin mantener inflamación máxima.
96.3. Reconocimiento adaptativo y diversidad#
Los linfocitos B y T producen una enorme diversidad de receptores mediante recombinación de segmentos génicos durante su desarrollo. El genoma no codifica por separado cada receptor completo. La combinación genera clones con especificidades distintas antes de encontrar su blanco, y mecanismos de selección eliminan o controlan muchos clones peligrosamente autorreactivos.
Los receptores de células B pueden reconocer estructuras en su forma accesible. Los receptores de células T reconocen fragmentos presentados por moléculas del complejo mayor de histocompatibilidad. Las células nucleadas exhiben péptidos internos mediante MHC I; células presentadoras especializadas usan también MHC II para comunicarse con linfocitos T colaboradores. Presentar no significa necesariamente activar: hacen falta señales de contexto y coestimulación.
Una célula dendrítica puede captar material en un tejido, madurar y migrar por linfa a un ganglio. Allí encuentra entre muchos linfocitos aquellos cuyos receptores encajan. Si las señales son apropiadas, esos clones proliferan y se diferencian. La selección clonal convierte una población rara en una respuesta numerosa; por ello la respuesta primaria tarda días en alcanzar plena magnitud.
La especificidad tiene límites. Un receptor reconoce rasgos moleculares y puede reaccionar con estructuras semejantes. Los patógenos cambian; los tejidos presentan mezclas; la afinidad evoluciona durante algunas respuestas B. «Un antígeno, un anticuerpo» es una simplificación: un antígeno contiene varios epítopos y una respuesta suele ser policlonal.
96.4. Anticuerpos, células y memoria inmunitaria#
Las células plasmáticas derivadas de linfocitos B secretan anticuerpos. Estos pueden bloquear unión o entrada, agrupar partículas, activar complemento y facilitar fagocitosis mediante su región constante. Las clases de anticuerpo difieren en distribución y funciones. La presencia de anticuerpos demuestra exposición o inmunización en ciertos contextos, pero el nivel no traduce de manera universal protección.
Los linfocitos T colaboradores coordinan respuestas mediante contacto y citocinas. Los citotóxicos pueden inducir muerte de células que presentan determinados péptidos, importante frente a infecciones intracelulares. No «matan virus» libres: reconocen células en contexto. Linfocitos reguladores y otros mecanismos restringen expansión y daño.
Después de controlar el estímulo, la mayoría de células efectoras desaparece. Persisten células de memoria B y T y, en algunos casos, células plasmáticas de larga vida. Una nueva exposición puede producir respuesta más rápida y eficaz. La memoria no es infalible ni eterna: depende del agente, sitio, evolución del blanco, edad y estado del sistema.
Las vacunas presentan antígenos o instrucciones antigénicas en un contexto diseñado para inducir memoria sin atravesar la enfermedad completa. Algunas evitan infección con gran eficacia; otras protegen sobre todo contra enfermedad grave o requieren refuerzos. Evaluarlas exige especificar desenlace y tiempo, no sólo preguntar si «funcionan».
96.5. Tolerancia y regulación#
La tolerancia reduce respuestas contra componentes propios y otros estímulos que conviene aceptar. Durante el desarrollo, linfocitos con reconocimiento fuerte de lo propio pueden morir, cambiar receptor o adquirir funciones reguladoras. Fuera de los órganos de desarrollo, ausencia de coestimulación, señales inhibitorias, supresión y eliminación contienen clones que escaparon.
La tolerancia no equivale a ceguera. El sistema vigila tejidos y puede responder cuando cambia el contexto: daño, infección o presentación persistente. En mucosas debe tolerar alimentos y muchos comensales mientras conserva defensa. Esa negociación depende de barrera, microbiota, metabolitos y células reguladoras.
La contracción posterior a una respuesta limita consumo de recursos y lesión colateral. Puntos de control inhibitorios reducen actividad linfocitaria; son necesarios para tolerancia, aunque algunos tumores los aprovechan. Bloquearlos puede reactivar inmunidad antitumoral y también causar inflamación contra tejidos sanos. La misma vía puede ser protectora o costosa según el problema.
96.6. Alergias, autoinmunidad y respuestas desproporcionadas#
En la alergia, una respuesta contra sustancias habitualmente inocuas causa síntomas. En reacciones inmediatas, IgE unida a mastocitos facilita liberación rápida de mediadores al reencontrar el alérgeno. Otras hipersensibilidades usan anticuerpos, complejos o células T. «Alergia» no significa cualquier intolerancia ni revela gravedad sin historia clínica.
La autoinmunidad aparece cuando respuestas adaptativas contribuyen a dañar componentes propios. Predisposición genética, hormonas, exposiciones y fallos de barrera o regulación pueden combinarse. Detectar un autoanticuerpo no siempre equivale a enfermedad: importan especificidad, título, síntomas y daño. A la inversa, una enfermedad autoinmunitaria no es simplemente «defensas bajas» o «altas», sino reconocimiento y regulación desviados.
La inmunodeficiencia reduce componentes de defensa por variantes genéticas, infección, fármacos, malnutrición u otras causas. Puede aumentar ciertos tipos de infección o cáncer, no una vulnerabilidad uniforme a todo. La inmunidad se organiza en módulos parcialmente redundantes; perder uno expone patrones particulares.
Una respuesta desproporcionada también puede surgir frente a infección real. Mediadores sistémicos, coagulación y alteración vascular pueden dañar órganos. Esto no demuestra que defenderse sea peor que infectarse; muestra que beneficio y daño dependen de localización, amplitud y control. «Fortalecer el sistema inmune» carece de precisión si no indica qué función, frente a qué riesgo y con qué evidencia.
Preguntas de transferencia#
Más inflamación significa una defensa mejor#
Ejemplo construido. Dos respuestas reconocen el mismo agente; una produce el doble de señal inflamatoria. ¿Puede declararse superior?
Mostrar respuesta razonada
No. Deben medirse control del agente, daño tisular, resolución y función posterior. Una señal mayor puede reclutar defensa útil o sobrepasar el beneficio. La intensidad aislada no define eficacia.
Encontrar anticuerpos demuestra inmunidad completa#
Ejemplo construido. Una prueba detecta anticuerpos y se concluye protección permanente.
Mostrar respuesta razonada
La interpretación depende de qué anticuerpo mide, su función, nivel y tiempo. También participan células T, memoria y barreras; el agente puede variar. Detección de exposición no equivale automáticamente a protección esterilizante ni duradera.
La inmunidad adaptativa comienza cuando termina la innata#
Ejemplo construido. Un esquema dibuja dos fases sin solapamiento.
Mostrar respuesta razonada
La innata configura presentación y coestimulación mientras la adaptativa empieza a expandirse. Después, anticuerpos y células T modifican fagocitosis e inflamación. Son mecanismos distintos que se acoplan durante gran parte de la respuesta.
Todo reconocimiento de lo propio causa autoinmunidad#
Ejemplo construido. Se detecta un clon autorreactivo y se diagnostica enfermedad.
Mostrar respuesta razonada
Algunos clones autorreactivos existen sin causar daño porque faltan activación, acceso tisular o condiciones efectoras y operan reguladores. La enfermedad exige una respuesta sostenida con consecuencias funcionales, no sólo reconocimiento potencial.
Fuentes y lecturas del capítulo#
Murphy, Kenneth; Weaver, Casey. Janeway's Immunobiology, 10.ª edición. Referencia integral para inmunidad innata, reconocimiento adaptativo, tolerancia y respuestas efectoras. (registro editorial)
National Institute of Allergy and Infectious Diseases. Immune System Overview. Introducción institucional a componentes, coordinación y memoria del sistema inmunitario. (NIAID)
Abbas, Abul K.; Lichtman, Andrew H.; Pillai, Shiv. Cellular and Molecular Immunology, 11.ª edición. Base para activación linfocitaria, tolerancia e inmunopatología. (registro editorial)
OpenStax. Anatomy and Physiology 2e, capítulo 21. Recorrido abierto por barreras, inmunidad innata y adaptativa. (capítulo)
World Health Organization. Vaccines and immunization. Recurso para principios, seguridad y alcance de la vacunación. (OMS)