PARTE IX · Biodiversidad, ecología y biosfera
86
Poblaciones: crecimiento, competencia y límites
Cómo cambian los números cuando nacimientos, muertes y movimientos interactúan con un ambiente variable
En este capítulo
Contar diez venados en un valle no revela por sí solo si la población está creciendo. Podrían ser muchos respecto del año anterior o los pocos supervivientes de un centenar. Tampoco indica cuántos nacieron, murieron o atravesaron los límites mientras observábamos. Una fotografía de abundancia adquiere sentido cuando se conecta con área, estructura y cambio temporal.
Una población es un conjunto de individuos de la misma especie que ocupa un área durante un periodo y puede interactuar o reproducirse en algún grado. La definición exige fronteras operativas. Un bosque, una isla o una cuenca pueden parecer unidades evidentes, pero los organismos cruzan sus bordes y distintas preguntas requieren escalas diferentes. La población de peces de un lago puede estar casi cerrada durante una estación y conectarse con otras al abrirse un cauce.
La ecología de poblaciones estudia cómo nacimientos, muertes y movimientos modifican ese conjunto, y cómo el número y la composición de individuos cambian a su vez las condiciones. Sus modelos no pretenden copiar cada detalle. Aíslan relaciones para preguntar qué patrón surgiría si ciertos supuestos fueran aproximadamente ciertos. La distancia entre el modelo y los datos no es un fracaso automático: puede señalar una variable omitida, un cambio de escala o un error de observación.
86.1. Abundancia, distribución y estructura#
El tamaño poblacional,
Los patrones agregados aparecen cuando los recursos están concentrados, la dispersión es corta o la vida social reúne individuos. Una distribución aproximadamente regular puede resultar de competencia territorial o inhibición entre vecinos. Un patrón compatible con azar no significa ausencia de procesos; varios mecanismos pueden compensarse hasta producirlo. Para explicar el patrón hay que comparar hipótesis a la escala donde actúan.
La estructura por edad o etapa determina lo que puede ocurrir después. Una colonia con muchos juveniles y pocos adultos reproductores puede ser numerosa pero vulnerable. En organismos con metamorfosis, tamaño o etapa suelen predecir mejor supervivencia y fecundidad que la edad cronológica. Una tabla de vida sigue cohortes o edades y resume probabilidades de supervivencia y reproducción; una matriz por etapas proyecta transiciones entre categorías.
Las curvas de supervivencia son resúmenes, no destinos individuales. Una población puede concentrar mortalidad al comienzo de la vida, repartirla de forma aproximadamente constante o conservar alta supervivencia hasta edades avanzadas. Esos perfiles cambian con depredación, cuidado parental y ambiente, y no corresponden limpiamente a tres clases universales. Además, seguir una cohorte nacida el mismo año responde una pregunta distinta de muestrear todas las edades presentes en una fecha: el primer diseño mezcla menos años ambientales, pero exige esperar; el segundo es más rápido y necesita supuestos para separar edad, periodo y generación.
La proporción de sexos importa cuando limita encuentros reproductivos, pero su efecto depende del sistema de apareamiento y de quién cuida o produce gametos. La diversidad genética influye en consanguinidad y capacidad de respuesta evolutiva, aunque un censo grande no garantiza un tamaño poblacional efectivo igualmente grande. Si pocos individuos dejan la mayoría de descendientes, la deriva genética puede ser intensa pese a una abundancia aparente elevada.
Las poblaciones se conectan mediante dispersión. Un conjunto de poblaciones locales enlazadas por movimientos se denomina metapoblación cuando extinciones y recolonizaciones locales forman parte relevante de la dinámica. Un parche vacío no es necesariamente hábitat inútil: puede estar entre eventos de colonización. Y un parche ocupado puede persistir sólo por inmigración continua desde otro lugar, un efecto de rescate que el recuento local no revela.
Describir una población exige, por tanto, declarar especie, espacio, periodo y unidad contada. En organismos clonales, «individuo» puede significar un brote visible o todo el genotipo conectado. En colonias o enjambres puede interesar la unidad reproductiva más que cada organismo. La definición adecuada es la que permite responder la pregunta sin ocultar el proceso.
86.2. Natalidad, mortalidad y migración#
El cambio más básico es un balance. Durante un intervalo, el tamaño aumenta con nacimientos e inmigración y disminuye con muertes y emigración:
En una población cerrada ideal, sin entradas ni salidas, puede expresarse el cambio continuo como:
El parámetro
El valor de
La misma tasa neta puede ocultar historias distintas. Una población con muchos nacimientos y muchas muertes podría tener
El tiempo también importa. Si una especie se reproduce en pulsos anuales, un modelo discreto puede representar mejor la secuencia que una ecuación continua. Si las crías tardan años en reproducirse, el efecto de una buena estación aparece con retraso. Una población puede seguir creciendo después de disminuir la fecundidad porque una cohorte grande está entrando en edad reproductiva; ese impulso demográfico impide interpretar instantáneamente una intervención.
Migración y dispersión no son ruido añadido a natalidad y mortalidad. Un corredor puede aumentar inmigración, pero también facilitar salida o propagación de enfermedad. Los individuos que se mueven no son necesariamente una muestra aleatoria: edad, estado y conducta influyen en la decisión. Por eso estimar un saldo migratorio no sustituye conocer quién se mueve y qué aporta a la población receptora.
86.3. Dependencia de la densidad y capacidad de carga#
Cuando aumenta la densidad, los individuos pueden competir más por alimento, refugio o lugares de reproducción; los patógenos pueden transmitirse con mayor facilidad y los depredadores localizar presas con menor esfuerzo. Si esos efectos reducen nacimientos o aumentan muertes por individuo, existe dependencia negativa de la densidad. También puede haber efectos positivos a densidades bajas: encontrar pareja, defenderse o modificar el hábitat resulta difícil cuando hay muy pocos individuos. Esto se conoce como efecto Allee y puede acelerar el declive.
El modelo logístico incorpora una reducción lineal de la tasa de crecimiento al acercarse
Cuando
La capacidad de carga,
El supuesto de respuesta inmediata rara vez se cumple por completo. Si los individuos consumen recursos antes de que la menor disponibilidad reduzca reproducción, la población puede sobrepasar el nivel sostenible y caer después. Retrasos temporales generan oscilaciones. A densidades muy altas, daño del hábitat puede reducir la capacidad futura; en otros casos, los organismos construyen refugios o mejoran condiciones y la elevan localmente.
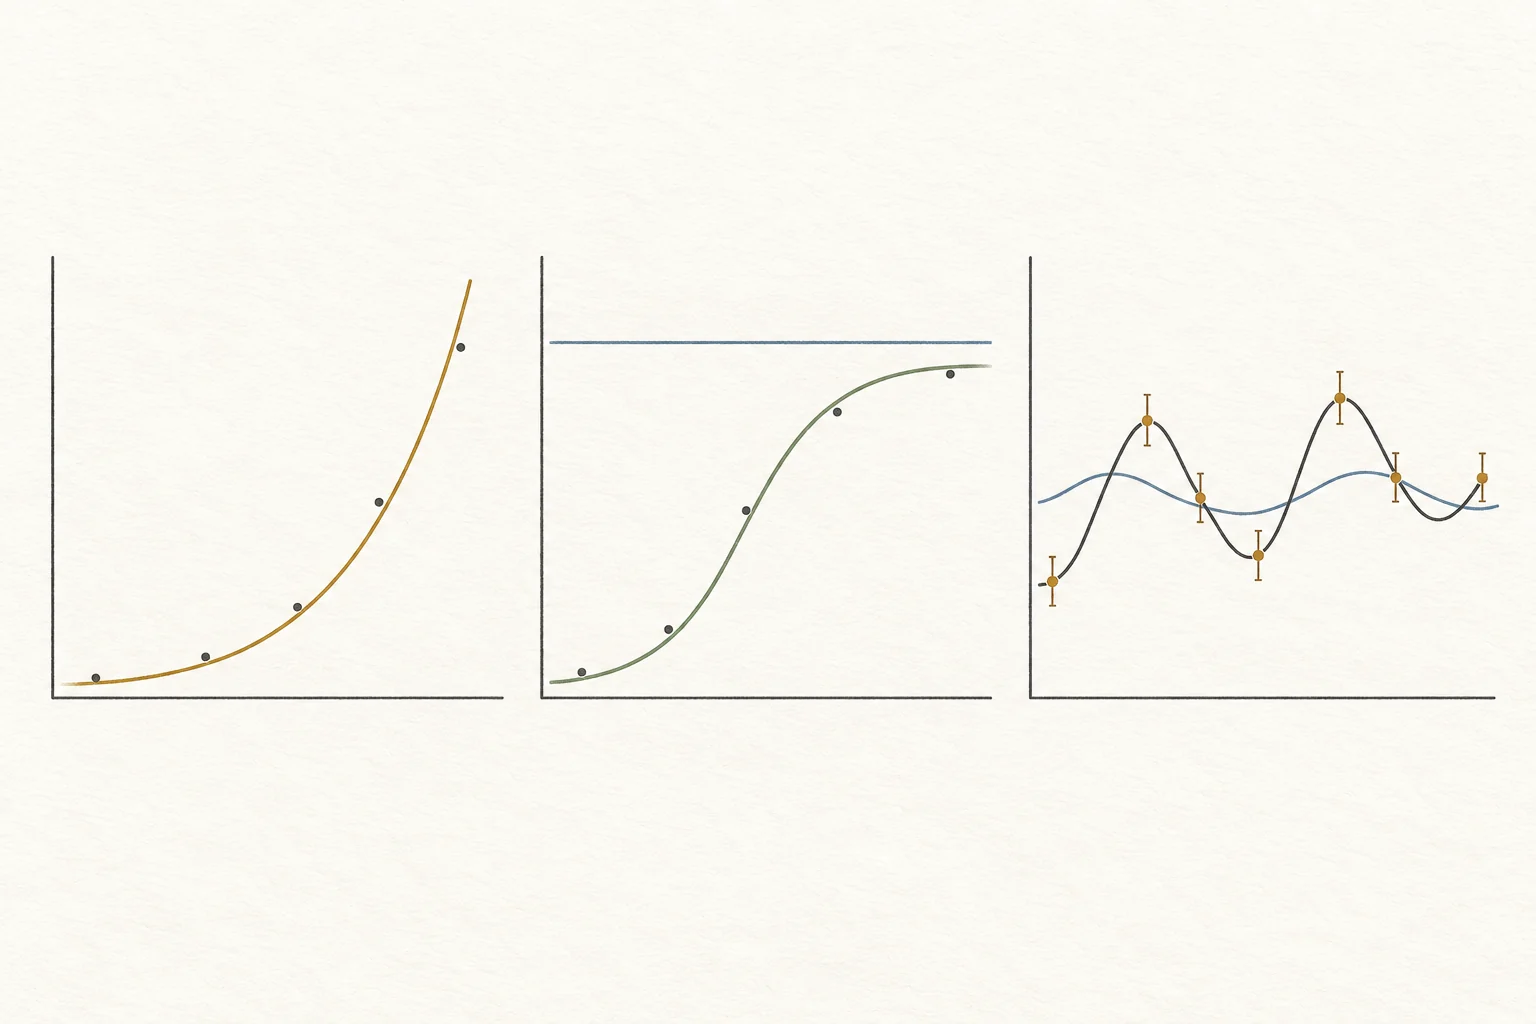
Clave de lectura. El crecimiento exponencial y el logístico aíslan relaciones útiles. En poblaciones reales, condiciones y respuestas cambian, actúan con retraso y se observan con error; por ello la capacidad de carga no es un techo fijo. Las curvas son conceptuales, no datos de una especie.
OpenStax presenta los modelos exponencial y logístico y hace explícito que el supuesto de una capacidad de carga constante no se cumple de forma general en poblaciones naturales. (OpenStax, dinámica y regulación poblacional)
86.4. Variabilidad ambiental y dinámica poblacional#
La densidad no controla todo. Una helada, un incendio o una tormenta pueden alterar supervivencia sin que el número previo determine directamente su intensidad. Llamar a estos efectos independientes de la densidad es una aproximación: una inundación puede afectar la misma fracción a distintas densidades, pero la recuperación posterior sí depender de encuentros, refugios y competencia.
La variación ambiental tiene dos componentes útiles. La estocasticidad ambiental hace que muchos individuos compartan un año bueno o malo. La estocasticidad demográfica surge porque nacimientos y muertes son sucesos discretos: incluso con probabilidades constantes, una población pequeña puede obtener por azar una secuencia desfavorable. Este segundo ruido pierde peso relativo en poblaciones grandes y puede empujar a la extinción a una pequeña sin que cambie la media ambiental.
Eventos extremos importan de forma desproporcionada. Promediar lluvia durante una década puede ocultar una sequía capaz de eliminar una cohorte completa. La secuencia también cuenta: dos años malos consecutivos no siempre equivalen a dos separados por recuperación. Las correlaciones espaciales determinan si varios parches fallan a la vez; una metapoblación no recibe rescate si todas sus fuentes sufren el mismo evento.
La dinámica puede ser cíclica sin una estación externa. Depredadores responden al aumento de presas con retraso; después reducen presas y, al faltar alimento, disminuyen ellos mismos. Sin embargo, una serie alternante no prueba por sí sola esa causa. Clima, alimento y enfermedad pueden producir ritmos semejantes o sincronizar poblaciones distantes.
Predecir requiere incertidumbre explícita. Un pronóstico poblacional puede presentar una mediana y un intervalo de trayectorias compatibles con variación de parámetros y ambiente. Cuanto más largo el horizonte, más se abren esas trayectorias. Un intervalo amplio no vuelve inútil el modelo: muestra qué decisiones siguen siendo robustas y qué nueva observación reduciría la incertidumbre.
86.5. Competencia, depredación y parasitismo#
La competencia intraespecífica ocurre cuando individuos de la misma especie reducen mutuamente el acceso a un recurso o su rendimiento. Puede ser por explotación, sin encuentro directo, o por interferencia, cuando defienden territorios o impiden acceso. El recurso debe ser limitante para que compartirlo reduzca desempeño; usar lo mismo no demuestra competencia si sobra.
Entre especies, la competencia puede modificar abundancia y distribución. El resultado no se deduce de quién «es más fuerte». Una especie puede aprovechar mejor recursos escasos y otra recolonizar con rapidez después de perturbaciones. Temperatura, depredadores y heterogeneidad espacial cambian el balance. La exclusión en un experimento simple no garantiza desaparición regional si existen refugios, estaciones o fuentes alternativas.
La depredación enlaza tasas de dos poblaciones. Una mayor abundancia de presas puede aumentar encuentros por depredador, y una dieta abundante puede elevar supervivencia o reproducción de depredadores. Pero la respuesta se satura: manejar y digerir presas consume tiempo. Las presas cambian conducta y refugio; los depredadores alternan especies. Una mortalidad añadida tampoco se traduce siempre individuo por individuo en menos población, porque puede compensarse con menor competencia entre supervivientes.
El parasitismo prolonga el contacto y suele no matar de inmediato al hospedador. La transmisión depende de vías, etapas y densidades relevantes. Para un parásito transmitido por contacto, la aglomeración puede aumentar oportunidades; para uno llevado por un vector, importan vector y clima. El efecto puede reducir fecundidad o conducta sin elevar mortalidad visible. Hospedador y parásito se modifican evolutivamente, pero «equilibrio» no significa benignidad inevitable.
Estas interacciones no actúan por pares aislados. Un depredador puede reducir al competidor dominante y permitir coexistencia; un parásito puede cambiar qué presa captura con facilidad; el refugio creado por una especie altera encuentros de otras. El capítulo 87 ampliará la unidad de análisis desde una población focal hacia comunidades y redes.
86.6. Muestreo y estimación en ecología#
Casi nunca se cuentan todos los individuos. Un censo completo puede ser posible en una colonia pequeña y visible, pero plantas subterráneas, peces móviles o aves entre copas se detectan de manera imperfecta. El número observado
La detección imperfecta afecta también a la distribución. Una especie registrada en tres de diez sitios podría ocupar sólo esos tres o estar presente en más y haber pasado inadvertida. Los modelos de ocupación usan visitas repetidas para estimar por separado presencia y detección, siempre que los cierres y dependencias asumidos sean razonables. No observar y observar cero son el mismo dato bruto, pero no la misma conclusión ecológica que demostrar ausencia.
Los cuadrantes estiman densidad de organismos inmóviles o lentos al contar áreas seleccionadas. Su ubicación debe representar el espacio sobre el que se infiere; colocar sólo parcelas accesibles sesga el resultado. Transectos registran detecciones a lo largo de líneas y pueden modelar cómo disminuye la probabilidad con la distancia. Grabadores, cámaras y ADN ambiental amplían cobertura, pero cada señal necesita calibración y puede persistir después de que el organismo se marchó.
En captura–marcado–recaptura, se marca una primera muestra
Si 40 animales fueron marcados y luego se capturan 50, de los que 10 llevan marca, la estimación puntual es 200. Depende de supuestos: población aproximadamente cerrada durante el intervalo, marcas conservadas, mezcla suficiente y probabilidades de captura comparables. Si los animales marcados evitan la trampa,
Toda estimación necesita incertidumbre y alcance. Un valor de 200 sin intervalo, fecha ni área parece más preciso de lo que es. Repetir muestreos permite separar cambio real de ruido, siempre que el protocolo sea comparable. Integrar conteos, marcas, telemetría y reproducción puede mejorar inferencia, pero no compensa un diseño que nunca observa una parte del hábitat.
Muestrear también puede alterar lo medido. Capturar produce estrés, caminar aplasta plantas y una cámara con cebo cambia visitas. El método debe minimizar daño y registrar sus efectos. La revisión del USGS sobre marcos de muestreo destaca que la inferencia depende tanto del diseño de observación como del modelo usado después. (USGS, muestreo e inferencia ecológica)
Preguntas de transferencia#
La población no cambió porque se contaron los mismos individuos#
Ejemplo construido. En dos años se observan cien aves en un humedal. ¿Puede concluirse que nacimientos y muertes fueron cero?
Mostrar respuesta razonada
No. Cien puede resultar de muchos nacimientos compensados por muertes, o de emigración compensada por inmigración. Además, la detección podría haber cambiado. Marcas, edades, reproducción y esfuerzo de muestreo ayudarían a reconstruir el balance. Igual abundancia final no implica ausencia de recambio ni de procesos intensos.
Duplicar la longitud duplica el número futuro#
Ejemplo construido. Una población creció 20 % durante un año. ¿Debe proyectarse el mismo aumento durante diez años?
Mostrar respuesta razonada
Sólo bajo el supuesto fuerte de una tasa per cápita constante y condiciones semejantes. Recursos, densidad, estructura de edades, migración y ambiente pueden cambiar. El crecimiento exponencial sirve como escenario de referencia durante intervalos, no como profecía. Una proyección responsable compara modelos y muestra incertidumbre.
La capacidad de carga es un máximo conocido#
Ejemplo construido. Un parque sostuvo mil herbívoros un año. ¿Queda demostrado que
Mostrar respuesta razonada
No. El valor observado puede estar por debajo o por encima de un nivel sostenible y reflejar inmigración o retrasos. Alimento, clima, depredadores y daño acumulado cambian las condiciones. Estimar
Menos presas después de introducir depredadores prueba el efecto#
Ejemplo construido. Tras aparecer un depredador, disminuye la presa durante un invierno seco. ¿Se ha identificado la causa?
Mostrar respuesta razonada
La coincidencia es compatible con depredación, pero también con falta de alimento, migración o menor detección. Habría que comparar áreas o periodos, medir dieta y mortalidad, y controlar sequía. El depredador puede además cambiar conducta sin matar más. Una atribución necesita una cadena de evidencia, no sólo dos curvas opuestas.
No observar una especie demuestra ausencia#
Ejemplo construido. Diez cámaras no registran un mamífero raro. ¿Puede declararse extinto localmente?
Mostrar respuesta razonada
No sin estimar probabilidad de detección. Si cada visita tiene baja probabilidad de producir imagen, varios fallos son esperables aun con presencia. Importan ubicación, duración, estación, cebo y conducta. Repetir muestreos y combinar indicios permite calcular la probabilidad de pasar por alto la especie y expresar la conclusión con incertidumbre.
Fuentes y lecturas del capítulo#
OpenStax. Biology 2e, Population Demography. Base para tamaño, densidad, distribución, tablas de vida y métodos introductorios de muestreo. (sección 45.1)
OpenStax. Biology 2e, Population Dynamics and Regulation. Desarrolla crecimiento exponencial y logístico, capacidad de carga y regulación dependiente de densidad. (sección 45.4)
OpenStax. Biology 2e, Community Ecology. Referencia introductoria para competencia, depredación, parasitismo y oscilaciones entre poblaciones. (sección 45.6)
Gould, W. R. y Kendall, W. L. Capture-recapture methodology. Revisión de métodos de marcaje, detección imperfecta, abundancia y supervivencia. (U.S. Geological Survey, 2013)
Thompson, W. L. y colaboradores. Sampling and analysis frameworks for inference in ecology. Explica la relación entre diseño de muestreo, modelos y alcance de la inferencia ecológica. (U.S. Geological Survey, 2019)
Williams, B. K., Nichols, J. D. y Conroy, M. J. Analysis and Management of Animal Populations. Referencia metodológica sobre tasas vitales, dinámica, decisión y seguimiento de poblaciones. (USGS, ficha bibliográfica)
Nature Education. Population Limiting Factors. Síntesis conceptual de recursos limitantes, densidad y capacidad de carga. (Scitable)