PARTE X · El cuerpo humano: organización y regulación
92
Respiración: intercambiar gases y regular el medio interno
Mover aire no basta: hay que acoplarlo con sangre, tejidos y metabolismo
En este capítulo
Respirar parece una sola acción: entra aire y sale aire. Sin embargo, el movimiento visible del tórax es apenas la primera etapa de una cadena. El aire debe alcanzar alvéolos ventilados; la sangre debe pasar junto a ellos; los gases deben cruzar una barrera; la circulación debe transportarlos; y las células deben consumir oxígeno y producir dióxido de carbono. Una falla en cualquiera de esos enlaces puede limitar el conjunto aunque los demás funcionen.
La palabra respiración se usa para procesos distintos. La ventilación mueve aire entre ambiente y alvéolos. El intercambio externo transfiere gases entre alvéolos y sangre. El intercambio interno ocurre entre sangre y tejidos. La respiración celular utiliza oxígeno en el metabolismo y produce dióxido de carbono. Distinguirlos evita afirmar, por ejemplo, que una respiración rápida garantiza oxigenación eficaz.
Este capítulo sigue esa cadena y muestra por qué oxígeno y dióxido de carbono no son problemas simétricos. También explica cómo el sistema nervioso regula la ventilación, cómo se enlaza con la circulación y por qué el dióxido de carbono participa de manera central en el equilibrio ácido-base.
92.1. Vías respiratorias y mecánica ventilatoria#
El aire entra por nariz o boca, atraviesa faringe, laringe y tráquea, y se distribuye por bronquios y bronquiolos. Las vías conducen, calientan, humidifican y filtran. Moco y cilios capturan y desplazan partículas; reflejos como tos y estornudo expulsan material. Esta defensa no es perfecta y puede alterarse por humo, infección, deshidratación o daño ciliar.
Los pulmones no poseen músculos que los inflen directamente. Están mecánicamente acoplados a la pared torácica por las pleuras y una fina capa de líquido. Al contraerse el diafragma, aumenta el volumen torácico; la presión pleural se vuelve más negativa y los pulmones se expanden. La presión alveolar cae brevemente por debajo de la atmosférica y entra aire. Durante una espiración tranquila, la relajación y el retroceso elástico suelen bastar.
La presión relevante depende del punto de comparación. La presión transpulmonar —diferencia entre presión alveolar y pleural— ayuda a mantener expandido el pulmón. Si entra aire al espacio pleural, se pierde parte del acoplamiento y el pulmón puede retraerse. Decir que el pulmón «se pega» a la pared es una simplificación: no hay adhesivo; hay un espacio sellado, líquido y fuerzas de presión.
La distensibilidad describe cuánto cambia el volumen por una variación de presión. Un pulmón muy rígido exige más trabajo para expandirse; uno excesivamente distensible puede vaciarse mal si pierde retroceso. La tensión superficial del líquido alveolar favorecería el colapso. El surfactante, producido por células alveolares, la reduce y ayuda especialmente a estabilizar alvéolos pequeños.
La resistencia al flujo se concentra en vías cuya geometría y tono pueden cambiar. Moco, contracción de músculo liso o pérdida de soporte aumentan trabajo. Aunque bronquiolos individuales son estrechos, su gran número en paralelo proporciona un área total amplia. Por eso el sitio de mayor resistencia no se deduce sólo mirando el diámetro de un conducto.
El volumen corriente es el aire movilizado en una respiración tranquila. Parte queda en vías conductoras y no alcanza superficies de intercambio: es espacio muerto anatómico. La ventilación alveolar por minuto se aproxima como:
donde
92.2. Intercambio alveolar#
Los alvéolos forman una superficie extensa junto a capilares. Entre aire y sangre hay una barrera compuesta por epitelio alveolar, membranas basales, intersticio mínimo y endotelio. Oxígeno y dióxido de carbono atraviesan por difusión. La velocidad depende de área, grosor, propiedades del gas y diferencia de presión parcial.
Una presión parcial expresa la contribución de un gas a la presión de una mezcla y se relaciona con su disponibilidad para difusión. El oxígeno se mueve desde alvéolo, donde su presión parcial suele ser mayor, hacia sangre venosa pulmonar; el dióxido de carbono sigue el gradiente contrario. No son aspirados por la hemoglobina a través de la pared: difunden y luego se combinan o transforman en la sangre.
La composición alveolar no es idéntica al aire exterior. El aire inspirado se humidifica, se mezcla con gas que permanecía en pulmones, pierde oxígeno y gana dióxido de carbono. La presión atmosférica también importa: en altura, la fracción de oxígeno es aproximadamente la misma, pero la presión total y por tanto su presión parcial disminuyen.
Engrosar la barrera, perder superficie o reducir el gradiente limita difusión. Líquido en alvéolos aumenta distancia; destrucción de tabiques reduce área. Sin embargo, muchos problemas de intercambio surgen antes por falta de correspondencia entre aire y sangre que por difusión pura.
La ventilación alveolar y la perfusión capilar deben coincidir regionalmente. Un alvéolo ventilado sin flujo suficiente desperdicia ventilación; un alvéolo perfundido sin aire suficiente permite que sangre salga con poco oxígeno. El pulmón no es uniforme: gravedad, postura, volúmenes y vasos producen diferencias. La regulación vascular pulmonar puede desviar sangre de zonas con poco oxígeno alveolar, aunque una alteración extensa vuelve insuficiente esa compensación.
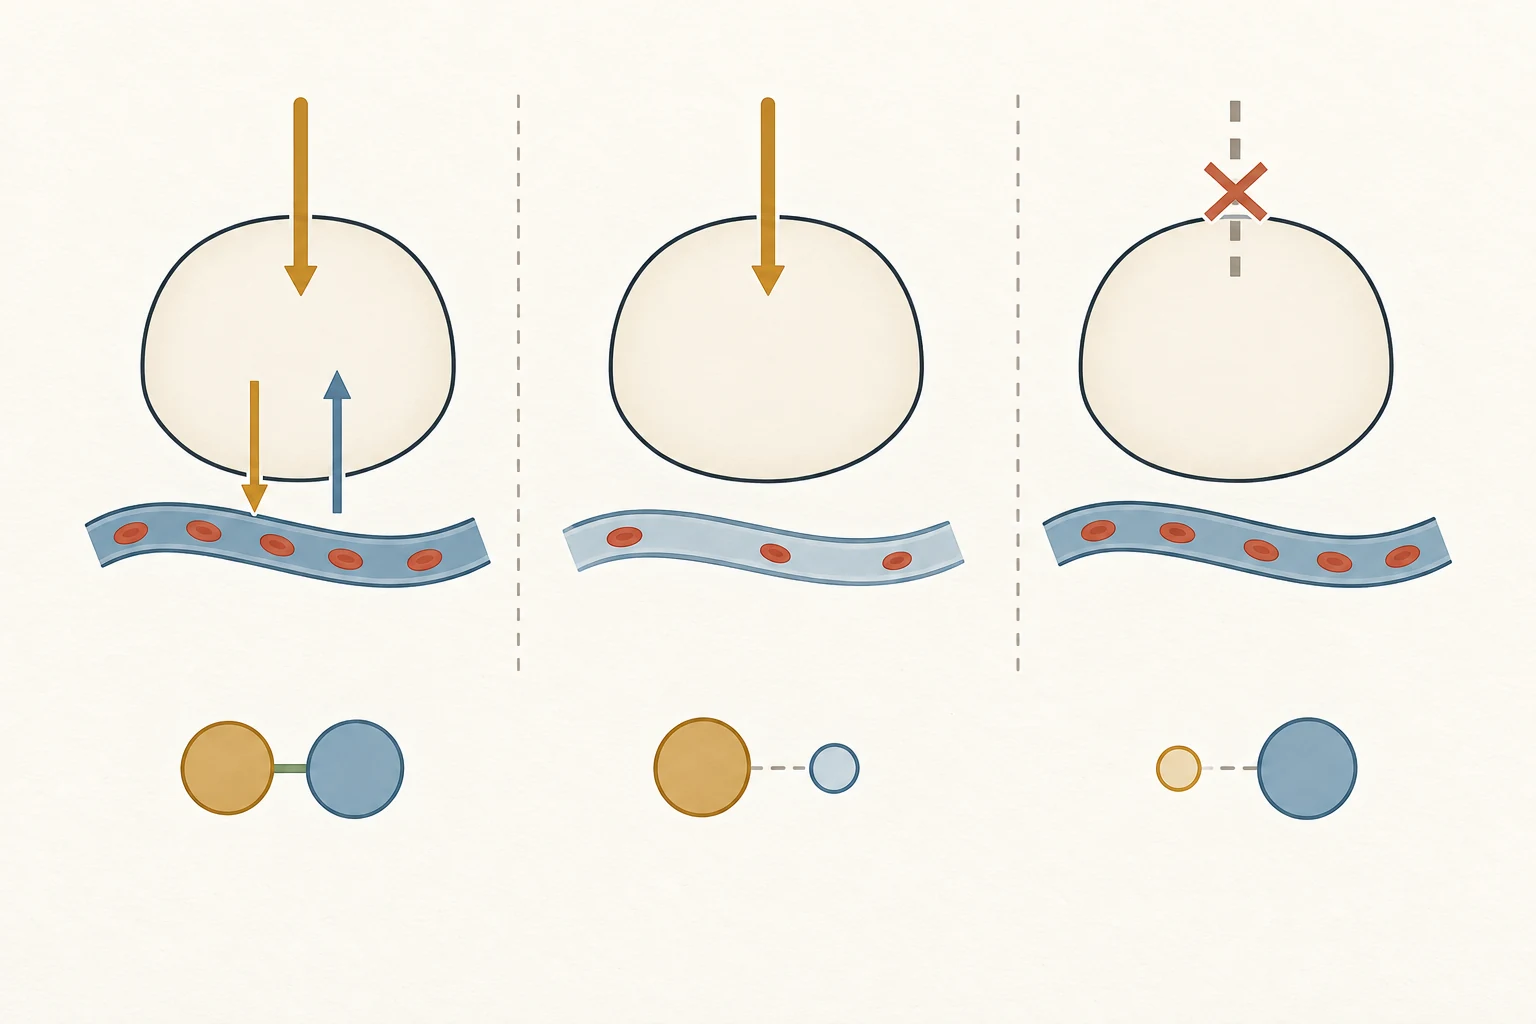
Clave de lectura. El intercambio depende de que aire y sangre lleguen al mismo lugar. Ventilar sin perfundir crea espacio muerto funcional; perfundir sin ventilar produce un cortocircuito fisiológico. Los puntos sólo indican dirección relativa de gases.
92.3. Transporte de oxígeno y dióxido de carbono#
Una pequeña fracción del oxígeno viaja disuelta en plasma; la mayor se une a hemoglobina. La presión parcial depende del oxígeno disuelto, mientras el contenido incluye el unido a hemoglobina. Esta distinción explica por qué presión, saturación y contenido no son equivalentes.
La curva de disociación de la hemoglobina es sigmoidea por cooperación entre subunidades. En los pulmones, una zona relativamente plana ayuda a conservar saturación ante descensos moderados de presión. En tejidos, una zona más inclinada facilita descargar oxígeno. Mayor temperatura, acidez y dióxido de carbono reducen afinidad en condiciones habituales, favoreciendo liberación donde el metabolismo es intenso: es parte del efecto Bohr.
El oxígeno debe aún difundirse desde capilar hasta mitocondrias. La entrega de oxígeno depende del contenido arterial y del flujo. El consumo depende de demanda y capacidad celular. Si baja uno, los tejidos pueden extraer una fracción mayor hasta cierto límite. Por eso una única medición periférica no describe toda la cadena.
El dióxido de carbono viaja disuelto, unido a proteínas y sobre todo transformado en bicarbonato. Dentro de eritrocitos, la anhidrasa carbónica acelera la reacción entre dióxido de carbono y agua. Los protones se amortiguan en parte con hemoglobina y el bicarbonato pasa al plasma a cambio de cloruro. En pulmones, el proceso se invierte y el gas se exhala.
Esta química conecta ventilación con pH. De manera simplificada:
Retener dióxido de carbono desplaza el sistema hacia más protones y menor pH; eliminarlo rápidamente hace lo contrario. Los pulmones modifican dióxido de carbono en minutos y los riñones ajustan bicarbonato y ácido en horas o días. Ninguno opera aislado.
92.4. Control de la respiración#
Redes del bulbo y la protuberancia generan y ajustan el ritmo respiratorio. Motoneuronas activan diafragma y otros músculos. El patrón cambia al hablar, dormir, hacer ejercicio o contener voluntariamente la respiración, pero el control voluntario tiene límites: la acumulación de dióxido de carbono y otras señales tiende a recuperar ventilación.
Quimiorreceptores centrales responden indirectamente a dióxido de carbono mediante cambios de pH en líquido alrededor del encéfalo. Quimiorreceptores periféricos en cuerpos carotídeos y aórticos responden a oxígeno arterial, dióxido de carbono y pH. En condiciones ordinarias, el dióxido de carbono es un impulsor potente; una caída importante de oxígeno adquiere mayor peso.
Receptores de estiramiento, irritación y mecánica pulmonar modifican el patrón. Señales de músculos y centros motores ayudan a elevar ventilación desde el inicio del ejercicio, antes de grandes cambios en gases arteriales. La regulación combina retroalimentación y anticipación.
La sensación de falta de aire, o disnea, no mide directamente oxígeno. Puede surgir de esfuerzo respiratorio, dióxido de carbono, señales pulmonares, expectativa y discrepancia entre orden motora y ventilación lograda. Una persona puede sentir disnea con saturación conservada o tener poco oxígeno sin sensación proporcional. Síntoma y variable fisiológica se relacionan, pero no son intercambiables.
92.5. Relación entre ventilación, circulación y metabolismo#
Durante ejercicio, el consumo de oxígeno y la producción de dióxido de carbono aumentan. Ventilación, gasto cardíaco y extracción tisular se elevan de manera coordinada. Los gases arteriales pueden mantenerse cerca de sus valores de reposo pese a flujos mucho mayores; estabilidad aquí significa regulación activa.
El límite puede aparecer en distintos lugares. Una vía estrecha eleva trabajo ventilatorio; una barrera alterada limita intercambio; poca hemoglobina reduce contenido; bajo gasto reduce entrega; mala perfusión impide distribución; mitocondrias o enzimas pueden limitar uso. Llamar a todo «falta de aire» es descriptivo, no mecanístico.
En altura, menor presión inspirada reduce oxígeno alveolar. La respuesta inmediata incluye más ventilación y frecuencia cardíaca. Durante días, riñones compensan cambios ácido-base y aumenta eritropoyetina; durante semanas cambia la masa eritrocitaria y otros rasgos. Aclimatar no elimina todos los límites ni vuelve equivalentes a personas y poblaciones con historias diferentes.
El dióxido de carbono muestra por qué respirar no es sólo adquirir oxígeno. Eliminar un producto metabólico sostiene pH; cambiar ventilación demasiado también alteralo. La respiración se entiende mejor como acoplamiento entre ambiente, bomba ventilatoria, superficie de intercambio, sangre, circulación y células.
Preguntas de transferencia#
Respirar dos veces más rápido duplica la ventilación alveolar#
Ejemplo construido. Una persona duplica la frecuencia usando respiraciones muy superficiales. ¿Se renueva necesariamente el doble de aire alveolar?
Mostrar respuesta razonada
No. Cada respiración debe superar el espacio muerto de las vías conductoras. Si el volumen corriente cae cerca de ese volumen, gran parte del aire sólo va y vuelve por conductos. Se necesitan volumen, frecuencia y espacio muerto para estimar ventilación alveolar.
Una fracción normal de oxígeno garantiza la misma disponibilidad en altura#
Ejemplo construido. La atmósfera conserva aproximadamente 21 % de oxígeno y se concluye que la altura no cambia su entrada. ¿Qué falta?
Mostrar respuesta razonada
Falta la presión total. Al disminuir presión barométrica, baja la presión parcial inspirada aunque la fracción sea semejante. Humidificación y dióxido de carbono alveolar reducen además la presión disponible. Fracción y presión parcial no son equivalentes.
Un pulmón ventilado intercambia bien aunque no reciba sangre#
Ejemplo construido. Un área pulmonar recibe aire, pero su vaso está obstruido. ¿Por qué la ventilación no basta?
Mostrar respuesta razonada
Sin perfusión suficiente no llega sangre venosa para cargar oxígeno ni retirar dióxido de carbono. Esa ventilación se desperdicia funcionalmente y aumenta el espacio muerto. El resultado global depende de extensión y de cómo se redistribuyen aire y flujo.
La saturación describe todo el oxígeno del organismo#
Ejemplo construido. Dos personas muestran 98 % de saturación, pero una tiene mucha menos hemoglobina. ¿Transportan igual cantidad?
Mostrar respuesta razonada
No. La saturación es proporción de sitios ocupados. El contenido depende también de concentración de hemoglobina y oxígeno disuelto; la entrega añade gasto cardíaco y perfusión. Un porcentaje semejante puede acompañar capacidades de transporte distintas.
Fuentes y lecturas del capítulo#
OpenStax. Anatomy and Physiology 2e, capítulo 22. Base para mecánica ventilatoria, intercambio, transporte y control respiratorio. (capítulo)
West, John B.; Luks, Andrew M. West's Respiratory Physiology: The Essentials, 11.ª edición. Referencia para difusión, relación ventilación-perfusión, transporte y altura. (registro editorial)
Pittman, Roland N. Regulation of Tissue Oxygenation. Integra ventilación, circulación, difusión y consumo en una misma cadena fisiológica. (NCBI Bookshelf)
National Center for Biotechnology Information. Physiology, Respiratory Drive. Síntesis del control neural y químico de la ventilación. (NCBI Bookshelf)
Wagner, Peter D. «The Physiological Basis of Pulmonary Gas Exchange». Revisión de difusión y desigualdad ventilación-perfusión como determinantes del intercambio. (PubMed)