PARTE IX · Biodiversidad, ecología y biosfera
84
Animales: organización corporal y diversidad funcional
Distintas maneras de alimentar, mover y coordinar un cuerpo multicelular
En este capítulo
Una esponja filtra agua sin boca, músculos ni cerebro. Una medusa captura alimento con tentáculos y lo procesa en una cavidad que también distribuye materiales. Un insecto respira mediante tubos que llevan aire hacia los tejidos. Un pulpo impulsa agua, manipula objetos y coordina ocho brazos con un sistema nervioso muy distribuido. Todos son animales, pero casi ninguna estructura concreta sirve para definirlos a todos.
Lo que comparten es una historia evolutiva y un conjunto flexible de rasgos. Son eucariotas multicelulares, heterótrofos y, en la mayoría de los casos, incorporan alimento antes de digerirlo. Sus células carecen de pared rígida y se relacionan mediante adhesiones y una matriz extracelular rica en proteínas como el colágeno. Durante el desarrollo, divisiones y movimientos celulares construyen capas y ejes corporales. Muchas especies se desplazan al menos en alguna etapa, aunque un adulto permanezca fijado al sustrato.
Estas semejanzas no forman un molde. Cada linaje ha modificado restricciones comunes: conseguir materia y oxígeno, retirar desechos, sostener el cuerpo, coordinar sus partes y dejar descendencia. La diversidad animal se entiende mejor comparando cómo se resuelven esos problemas que memorizando una procesión de nombres. La comparación debe incorporar además el parentesco: dos estructuras pueden parecerse porque fueron heredadas de un antepasado o porque presiones semejantes produjeron soluciones convergentes.
84.1. Tejidos, simetría y planes corporales#
Un tejido es un conjunto organizado de células y materiales extracelulares que participan en funciones relacionadas. En muchos animales se reconocen cuatro familias amplias. Los epitelios cubren superficies y delimitan cavidades; el tejido conectivo une, sostiene o transporta; el muscular genera fuerza mediante contracción; el nervioso transmite y procesa señales. Estas categorías son útiles para describir numerosos bilaterales, en especial vertebrados, pero no deben imponerse sin matices a todos los animales. Las esponjas, por ejemplo, poseen tipos celulares especializados sin la misma organización tisular de otros linajes.
Los tejidos construyen órganos, y los órganos pueden integrarse en sistemas. La jerarquía célula–tejido–órgano–sistema no implica que cada función pertenezca a una caja. La pared del intestino digiere, absorbe, detecta señales, se defiende y se mueve; el sistema circulatorio transporta gases, nutrientes, calor, hormonas y células defensivas. La especialización reparte tareas, pero obliga a coordinar regiones interdependientes.
El plan corporal describe relaciones espaciales y de desarrollo relativamente estables: ejes, simetría, capas embrionarias, cavidades y repetición de unidades. No es un plano dibujado antes de la evolución ni una colección de piezas intercambiables. Surge durante el desarrollo mediante señales entre células, regulación génica, fuerzas mecánicas y crecimiento. Variaciones en esos procesos pueden alterar proporciones o estructuras sin reconstruir el organismo desde cero.
La simetría ayuda a leer esa organización. Un cuerpo aproximadamente radial dispone partes alrededor de un eje oral–aboral y puede encontrarse con estímulos desde muchas direcciones. La simetría bilateral distingue lados derecho e izquierdo y suele acompañar un eje anterior–posterior relacionado con movimiento dirigido. La concentración de órganos sensoriales y tejido nervioso en el extremo que avanza se llama cefalización. Son tendencias, no reglas absolutas: las estrellas de mar adultas muestran simetría radial derivada de antepasados bilaterales, y los órganos internos de un vertebrado no son imágenes perfectas a ambos lados.
La forma también limita tamaño. Una célula intercambia sustancias a través de superficie, mientras sus necesidades dependen en buena medida de su volumen. Si un objeto conserva la forma y su longitud característica se multiplica por
Al crecer, disminuye la superficie disponible por unidad de volumen y aumentan distancias internas. Pliegues, cuerpos delgados, cavidades, branquias, pulmones y redes de transporte modifican esa restricción. No «vencen» la geometría: construyen más superficie efectiva o reducen el trayecto que deben recorrer gases, nutrientes y desechos. OpenStax relaciona simetría, forma corporal, tamaño e intercambio en su introducción a la fisiología animal. (OpenStax, forma y función animal)
84.2. Alimentación, intercambio y transporte#
Los animales obtienen carbono y energía química de otros organismos o de sus restos. Incorporar alimento permite concentrarlo en un espacio donde enzimas rompen proteínas, carbohidratos y lípidos antes de la absorción. Una cavidad gastrovascular posee una abertura que sirve para entrada y salida; un tubo digestivo completo separa boca y ano, de modo que el contenido puede avanzar mientras regiones sucesivas cumplen funciones diferentes. Ninguna configuración es universalmente superior: su utilidad depende del tamaño, dieta, ritmo de alimentación y forma de vida.
Hay excepciones que revelan el mecanismo. Las esponjas impulsan agua a través de poros; células con flagelos capturan partículas y otras distribuyen nutrientes. Algunos parásitos intestinales han perdido el aparato digestivo y absorben moléculas ya procesadas por el hospedador. Por eso «los animales ingieren» es una buena generalización, pero no una condición sin excepciones. Lo común es la heterotrofía, no un órgano concreto.
La digestión resuelve sólo la entrada de unidades pequeñas. Cada célula necesita además intercambiar gases, agua, iones y desechos. En cuerpos muy delgados o pequeños, la difusión puede cubrir distancias suficientes. Una cavidad muy ramificada acerca el alimento a los tejidos. Cuando crecen el grosor y la actividad, algún sistema de transporte interno suele reducir los trayectos de difusión.
Un sistema circulatorio abierto impulsa hemolinfa por vasos y espacios donde baña órganos; uno cerrado mantiene la sangre dentro de vasos y realiza intercambios a través de paredes finas. «Abierto» no significa desordenado ni «cerrado» garantiza mayor rendimiento en toda circunstancia. La presión, el gasto energético y el control regional difieren, pero ambos diseños sostienen animales activos. Los insectos muestran además que circulación y respiración pueden desacoplarse: su hemolinfa distribuye nutrientes, mientras una red de tráqueas conduce gases desde aberturas externas hacia los tejidos.
Branquias y pulmones son superficies delgadas, húmedas y extensas donde los gases se difunden siguiendo diferencias de presión parcial. La ventilación renueva el medio en un lado; la circulación o el fluido corporal renueva el otro. En una branquia de pez, flujos opuestos de agua y sangre pueden conservar un gradiente de oxígeno a lo largo del intercambio. En pulmones, ramificaciones multiplican área interna. Respirar, por tanto, no es sólo mover aire o agua: es sostener gradientes y transportar después los gases hasta las células.
La excreción cierra otro balance. El metabolismo produce compuestos nitrogenados cuya toxicidad y eliminación dependen del agua disponible. Amoniaco, urea y ácido úrico representan combinaciones diferentes de toxicidad, solubilidad y coste de síntesis. Riñones, nefridios y otros órganos regulan también sales y volumen de agua. Reducirlos a «filtros de desechos» oculta que recuperan selectivamente sustancias y mantienen el medio interno dentro de intervalos compatibles con la vida.
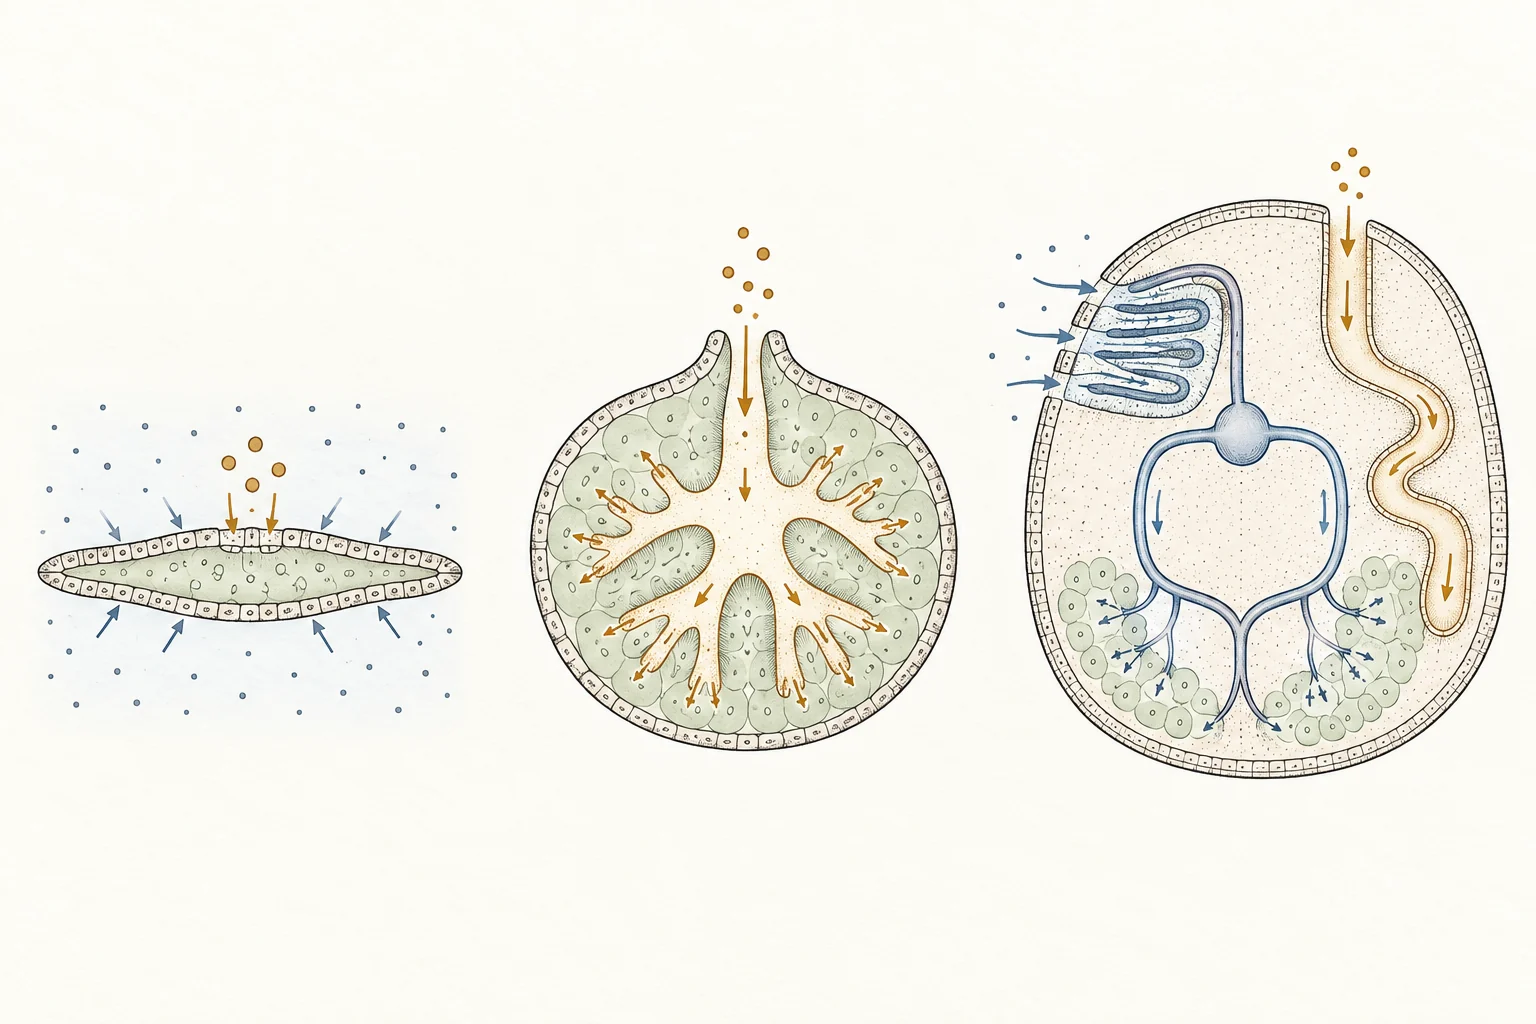
Clave de lectura. Al aumentar grosor y actividad, la difusión directa deja de bastar a distancias largas. Pliegues, cavidades y sistemas de transporte acercan superficies de intercambio a las células. Los esquemas muestran soluciones distintas, no una secuencia obligatoria ni una jerarquía evolutiva.
84.3. Movimiento, percepción y coordinación#
El movimiento animal comienza en escalas diferentes. Cilios baten sobre una superficie celular; células musculares acortan elementos de su citoesqueleto; un cuerpo deforma un esqueleto hidrostático, tira de una cubierta externa o mueve piezas de un endoesqueleto. Para producir locomoción, la fuerza interna debe transmitirse al agua, al suelo o al aire. Una contracción que no encuentra apoyo puede cambiar la forma sin desplazar el centro de masa.
Un esqueleto hidrostático usa un volumen de fluido confinado contra el que actúan músculos, como ocurre en numerosos gusanos y en partes de otros animales. Un exoesqueleto ofrece protección y puntos de inserción, pero en artrópodos debe renovarse durante el crecimiento. Un endoesqueleto crece dentro del cuerpo y soporta palancas articuladas. Los tres pueden producir movimientos precisos. La pregunta útil no es cuál es «más avanzado», sino qué fuerzas soporta, cómo crece, cuánto cuesta mantenerlo y en qué medio trabaja.
Moverse con eficacia requiere información. Receptores transforman luz, sustancias químicas, presión, vibración, temperatura o deformación en señales celulares. Un receptor no copia el mundo: responde a un intervalo y puede adaptarse. El sistema nervioso combina señales sensoriales con estado interno y actividad previa para modificar músculos, glándulas o conducta. Las hormonas viajan con mayor lentitud en muchos sistemas y coordinan procesos como crecimiento, muda, metabolismo y reproducción.
La organización nerviosa abarca redes difusas, cordones, ganglios y encéfalos. Una red nerviosa puede coordinar contracciones sin un centro dominante. En muchos bilaterales, ganglios integran regiones concretas; en otros, un encéfalo concentra procesamiento, pero continúa dependiendo de circuitos periféricos. El pulpo ilustra la distribución: una gran parte de sus neuronas se encuentra en los brazos, que procesan información local mientras interactúan con centros superiores. Centralizado y distribuido no son alternativas absolutas.
Tampoco hay una medida única de capacidad sensorial. Una abeja detecta patrones de luz que una persona no ve; algunos peces perciben campos eléctricos; una serpiente puede usar radiación infrarroja como señal térmica. Estas diferencias no hacen que una especie perciba «más realidad» en general. Cada sistema selecciona variables útiles dentro de sus límites físicos e históricos. El capítulo 85 examinará cómo esa información se convierte en decisiones y conducta.
La coordinación tiene costes y retardos. Conducir señales, mantener gradientes iónicos y contraer músculo consume energía. Un cuerpo grande tarda más en comunicar extremos si no aumenta velocidad o reorganiza circuitos. Un movimiento rápido puede sacrificar precisión, resistencia o seguridad. La fisiología compara esos compromisos sin suponer que la selección natural maximiza una propiedad aislada.
84.4. Reproducción y ciclos vitales#
En la reproducción sexual, la meiosis produce células haploides y la fecundación reúne material genético en un cigoto. En la mayoría de los animales, la fase multicelular es diploide y los gametos constituyen la fase haploide. A partir del cigoto, divisiones tempranas forman un embrión cuyas células cambian de posición y destino. Capas embrionarias y ejes organizan después tejidos y órganos. El desarrollo no se limita a agrandar una miniatura: construye progresivamente relaciones espaciales.
La fecundación puede ocurrir fuera o dentro del cuerpo. Liberar gametos al agua puede alcanzar muchos descendientes potenciales, pero depende de sincronía, concentración y condiciones ambientales. La fecundación interna protege el encuentro entre gametos frente a ciertos riesgos, aunque exige transferencia y puede aumentar la inversión por intento. Ninguna determina por sí sola el cuidado posterior: hay fecundación externa con defensa intensa de huevos e interna con poca atención parental.
Muchos animales también se reproducen asexualmente por gemación, fragmentación o desarrollo de óvulos sin fecundación. Esto permite que un individuo deje descendencia sin encontrar pareja, pero no produce siempre copias genéticamente idénticas: la meiosis, la recombinación, mutaciones y formas distintas de partenogénesis cambian el resultado. Reproducción sexual y asexual pueden alternarse según estación, densidad o etapa del ciclo.
Una larva no es simplemente un adulto pequeño. Puede vivir en otro hábitat, comer otro recurso y dispersarse de manera distinta. La metamorfosis reorganiza tejidos y funciones para pasar a una etapa juvenil o adulta. En una mariposa, oruga y adulto reparten crecimiento y reproducción; en muchos animales marinos, larvas nadadoras conectan poblaciones mientras adultos permanecen fijos. Cambiar de forma reduce competencia entre etapas en algunos casos, pero también expone cada transición a riesgos específicos.
Los ciclos vitales distribuyen una cantidad limitada de energía entre crecimiento, mantenimiento y reproducción. Producir muchos descendientes pequeños, pocos grandes, cuidar crías o reproducirse varias veces son combinaciones, no categorías morales. Su éxito depende de mortalidad, variabilidad y disponibilidad de recursos. La introducción de OpenStax a la reproducción animal subraya que fecundación, cuidado y roles reproductivos muestran combinaciones diversas y no pueden deducirse unos de otros. (OpenStax, reproducción animal)
84.5. Grandes linajes y relaciones evolutivas#
Los animales forman un clado: un antepasado común y todos sus descendientes. Dentro de él, los nombres Porifera, Cnidaria, Arthropoda, Mollusca, Annelida, Echinodermata y Chordata, entre otros, designan ramas, no grados de complejidad. Un árbol filogenético representa hipótesis de parentesco mediante bifurcaciones. Girar una rama alrededor de un nodo no cambia esas relaciones, y la posición a izquierda o derecha no indica antigüedad o superioridad.
Entre los animales bilaterales se reconocen tres grandes conjuntos. Los ecdisozoos, que incluyen artrópodos y nematodos, mudan una cubierta externa. Los espiralios —un conjunto que comprende moluscos, anélidos y otros linajes— comparten parentesco revelado por caracteres de desarrollo y datos moleculares, aunque no todos conservan cada rasgo que dio nombre a agrupaciones históricas. Los deuteróstomos incluyen equinodermos y cordados. Una persona está, por ello, más emparentada con una estrella de mar que con un pulpo, aunque la anatomía adulta no lo haga evidente.
«Invertebrados» reúne a todos los animales sin columna vertebral, pero no constituye una rama evolutiva equivalente a Vertebrata. Es una categoría práctica definida por ausencia e incluye la inmensa mayoría de formas animales. Del mismo modo, los peces no forman siempre un grupo separado de los vertebrados terrestres si se exige incluir a todos los descendientes: los tetrápodos surgieron dentro de un linaje de vertebrados con aletas lobuladas.
Los árboles se reconstruyen combinando anatomía, desarrollo, fósiles y secuencias. Rasgos parecidos pueden haber aparecido de manera independiente; otros pueden perderse o cambiar tanto que resulta difícil reconocerlos. Los modelos moleculares también dependen del muestreo y de supuestos sobre cómo evolucionan las secuencias. Por eso algunas ramas tempranas siguen discutidas, incluida la posición relativa de esponjas y ctenóforos respecto del resto de animales. Aceptar esa incertidumbre evita inventar un antepasado con rasgos que el árbol todavía no permite decidir. (King y Rokas, 2017)
Una clasificación cambia cuando cambia la mejor hipótesis de parentesco, no porque los organismos hayan cambiado de repente. OpenStax ofrece un panorama introductorio de cómo datos morfológicos y moleculares reordenaron grupos animales y por qué un árbol es una hipótesis revisable. (OpenStax, filogenia animal)
84.6. Comparación sin jerarquías de perfección#
Una secuencia que va de esponja a gusano, pez y ser humano parece ordenar la diversidad, pero mezcla parentesco con un criterio elegido de antemano. La evolución no trabaja hacia una meta. Cada linaje actual ha atravesado el mismo tiempo desde sus antepasados comunes y conserva combinaciones que permitieron persistir en determinadas condiciones. Una esponja moderna no es el antepasado vivo de los demás animales.
«Complejidad» necesita una variable. Puede significar número de tipos celulares, niveles de organización, conducta, conectividad nerviosa o regulación génica. Esos indicadores no siempre cambian juntos. Un parásito puede perder órganos que sus antepasados poseían y, al mismo tiempo, desarrollar ciclos vitales y mecanismos de evasión muy especializados. Un pulpo y un cuervo resuelven tareas flexibles con cerebros construidos sobre historias independientes. Declarar uno «más evolucionado» no especifica nada medible.
La comparación funcional sí puede ser rigurosa. Se puede preguntar cuánta energía cuesta recorrer una distancia, qué concentración de oxígeno sostiene un cuerpo, cuántos descendientes llegan a reproducirse o con qué precisión se detecta una señal. Cada respuesta vale bajo condiciones definidas y puede revelar compromisos. Alas favorecen vuelo, pero exigen soporte, musculatura y energía; una cubierta gruesa protege, pero dificulta intercambio o crecimiento.
También conviene separar adaptación de perfección. La selección natural modifica variantes heredables disponibles en poblaciones; no empieza desde cero, no anticipa ambientes futuros y no elimina todos los conflictos. Una estructura puede cumplir varias funciones, arrastrar límites históricos y ser suficiente sin ser óptima. El cuerpo animal es una solución heredada y continuamente reajustada, no una máquina diseñada para maximizar cada componente.
Comparar sin jerarquías no obliga a fingir que todas las capacidades son iguales. Un halcón vuela y una lombriz no; una lombriz atraviesa suelo compacto de una manera que el halcón no puede. La diferencia es real, pero su valoración depende de la tarea. El análisis gana precisión cuando sustituye una escala general de superioridad por preguntas concretas sobre mecanismo, ambiente e historia.
Preguntas de transferencia#
Un animal mayor necesita células mayores#
Ejemplo construido. Dos especies emparentadas tienen formas semejantes, pero una alcanza diez veces la longitud de la otra. ¿Debe cada célula de la especie grande ser diez veces mayor?
Mostrar respuesta razonada
No. Un cuerpo mayor suele contener más células y puede reorganizar tejidos sin aumentar cada célula en la misma proporción. Si conservara exactamente la forma, su volumen crecería más deprisa que su superficie externa, por lo que necesitaría reducir distancias internas mediante pliegues, superficies respiratorias o transporte. El tamaño celular está limitado además por intercambio, control y arquitectura. Deben medirse células y sistemas; el tamaño corporal no basta para inferirlos.
Un sistema circulatorio cerrado siempre es superior#
Ejemplo construido. Se comparan un insecto con circulación abierta y un vertebrado con circulación cerrada. ¿Permite la etiqueta concluir cuál transporta oxígeno mejor?
Mostrar respuesta razonada
No, porque en el insecto el oxígeno llega principalmente por tráqueas y no depende del transporte de la hemolinfa como en el vertebrado. Un sistema cerrado permite ciertas presiones y control regional, pero tiene costes y no es una mejora universal separada del resto del cuerpo. La comparación debe identificar qué sustancia se transporta, a qué distancia, con qué tasa y mediante qué sistema.
Tener cerebro significa controlar cada movimiento desde un centro#
Ejemplo construido. Un animal posee un encéfalo grande. ¿Se sigue que cada ajuste muscular se calcula allí antes de ocurrir?
Mostrar respuesta razonada
No. Reflejos, ganglios locales, circuitos espinales o redes periféricas pueden coordinar respuestas sin esperar una orden detallada. El encéfalo integra información y modifica esos circuitos, pero control central y procesamiento distribuido coexisten. Para demostrar dónde se decide una acción habría que registrar o perturbar regiones concretas y observar qué componentes del movimiento cambian.
Una larva y un adulto que comen cosas distintas son especies distintas#
Ejemplo construido. Una larva acuática consume algas y el adulto volador captura insectos. ¿Por qué la dieta y la forma no bastan para separarlos en especies?
Mostrar respuesta razonada
Las etapas pertenecen a un mismo ciclo vital conectado por desarrollo y comparten continuidad genética. La metamorfosis puede cambiar anatomía, hábitat y función de manera radical. La identidad de especie se evalúa con historia vital, reproducción, parentesco y otros datos; no se deduce de semejanza externa. Separar nichos entre etapas puede reducir competencia, pero eso debe comprobarse en cada caso.
El árbol coloca a los seres humanos al final#
Ejemplo construido. Un diagrama filogenético muestra a los humanos en el extremo derecho. ¿Indica esa posición que son el resultado final de la evolución animal?
Mostrar respuesta razonada
No. Las ramas terminales pueden girarse alrededor de sus nodos sin cambiar parentescos. La derecha, arriba o el orden de lectura son decisiones gráficas. Los humanos son una rama actual entre muchas y comparten antepasados más o menos recientes con las demás. Para leer el árbol hay que seguir nodos comunes, no buscar una cima ni una dirección de progreso.
Fuentes y lecturas del capítulo#
OpenStax. Biology 2e, Features of the Animal Kingdom. Introducción a los rasgos compartidos, reproducción y desarrollo temprano de los animales. (sección 27.1)
OpenStax. Biology 2e, Features Used to Classify Animals. Referencia para simetría, capas embrionarias, cavidades y criterios históricos de clasificación. (sección 27.2)
OpenStax. Biology 2e, Animal Phylogeny. Panorama de las grandes ramas animales y del uso combinado de anatomía, fósiles y datos moleculares. (sección 27.3)
OpenStax. Biology 2e, Animal Form and Function. Base para restricciones de tamaño y forma, proporción superficie–volumen y organización corporal. (sección 33.1)
OpenStax. Biology 2e, Animal Primary Tissues. Referencia para funciones generales de tejidos epitelial, conectivo, muscular y nervioso. (sección 33.2)
OpenStax. Biology 2e, Digestive Systems. Comparación entre cavidades digestivas, tubos completos, digestión y absorción. (sección 34.1)
OpenStax. Biology 2e, Animal Reproduction. Marco para reproducción sexual y asexual, fecundación y diversidad de ciclos vitales. (capítulo 43)
King, N. y Rokas, A. Embracing Uncertainty in Reconstructing Early Animal Evolution. Revisión de la incertidumbre sobre las primeras ramificaciones animales y sus consecuencias interpretativas. (Current Biology, 2017)