PARTE X · El cuerpo humano: organización y regulación
91
Circulación y sangre: transportar, distribuir y proteger
Una red pulsátil que enlaza intercambio, demanda y defensa
En este capítulo
En pocos segundos, una molécula disuelta en el plasma puede pasar del intestino al hígado; un glóbulo rojo puede cruzar un capilar pulmonar, cargar oxígeno y dirigirse hacia un músculo; una plaqueta puede encontrar una pared dañada e iniciar un tapón localizado. La circulación hace posible esa conectividad, pero no distribuye todo por igual ni funciona como una tubería rígida.
El corazón aporta energía al flujo. Los vasos ofrecen rutas cuya resistencia cambia. La sangre transporta células, gases, nutrientes, hormonas, calor y productos de desecho. En la microcirculación, esos materiales atraviesan barreras según gradientes, permeabilidad y fuerzas. El objetivo funcional no es «mover sangre» en abstracto, sino mantener una perfusión suficiente: flujo útil a través de tejidos con demandas variables.
Este capítulo sigue la circulación desde el ciclo cardíaco hasta los capilares y el retorno venoso. Después examina la sangre y la coagulación. El capítulo 92 añadirá el intercambio pulmonar; aquí interesa comprender cómo una red cerrada transforma contracciones rítmicas en transporte regulado.
91.1. Corazón y ciclo cardíaco#
El corazón humano posee dos bombas acopladas. El lado derecho recibe sangre de la circulación sistémica y la impulsa hacia los pulmones. El izquierdo recibe sangre pulmonar y la impulsa hacia el resto del cuerpo. Ambos lados desplazan, a largo plazo, el mismo volumen: si uno acumulara una diferencia persistente, la sangre se almacenaría de manera progresiva en uno de los circuitos.
Cada lado contiene una aurícula y un ventrículo. Las aurículas reciben y contribuyen al llenado; los ventrículos generan la mayor presión de eyección. Válvulas entre cámaras y en las salidas se abren o cierran según diferencias de presión. No son puertas activadas por una orden independiente: el gradiente las mueve y su estructura reduce el retroceso. Los sonidos cardíacos principales corresponden al cierre de grupos de válvulas y a vibraciones asociadas, no al golpe directo del corazón contra el tórax.
El ciclo cardíaco alterna llenado y eyección. Durante la diástole ventricular, la presión baja permite entrar sangre. La contracción auricular completa parte del llenado, aunque en reposo mucho ocurre antes de ella. En la sístole ventricular, la presión cierra válvulas auriculoventriculares; cuando supera la presión arterial, abre las válvulas de salida y expulsa sangre. El ventrículo no se vacía por completo.
El volumen expulsado en un latido es el volumen sistólico. Multiplicado por la frecuencia cardíaca produce el gasto cardíaco:
donde
El miocardio genera su propio ritmo mediante células marcapasos. Su actividad eléctrica se propaga por una vía especializada para coordinar aurículas y ventrículos. El sistema nervioso autónomo y señales químicas ajustan frecuencia y fuerza, pero no crean cada latido normal. Un electrocardiograma registra diferencias eléctricas en la superficie corporal; no representa directamente la fuerza del bombeo ni una imagen del corazón.
La relación de Frank–Starling describe que, dentro de límites fisiológicos, un mayor llenado estira las fibras y puede aumentar la fuerza del latido siguiente. Así se ayuda a emparejar retorno y eyección. No significa que cualquier expansión mejore la bomba: estiramiento excesivo, daño muscular o cargas anormales cambian la respuesta.
91.2. Vasos, presión y resistencia#
La sangre fluye cuando existe una diferencia de presión. Una relación útil es:
donde
Las arterias llevan sangre desde el corazón y las venas la llevan hacia él. Esa definición depende de dirección, no de oxigenación. La arteria pulmonar transporta sangre con menos oxígeno hacia los pulmones; las venas pulmonares devuelven sangre oxigenada. Las grandes arterias elásticas se expanden durante la eyección y recuperan forma entre latidos, suavizando el flujo pulsátil.
Las arteriolas ofrecen una fracción importante de la resistencia variable. Su músculo liso cambia el radio de la luz en respuesta a señales locales, nerviosas y hormonales. En un tubo ideal con flujo laminar, la resistencia varía de manera muy intensa con el radio; la ley de Poiseuille ofrece una aproximación. Los vasos reales se ramifican, laten, se deforman y contienen células, por lo que la ecuación es un modelo, no una descripción completa.
Los capilares son numerosos y estrechos. Aunque cada uno admite poco flujo, su área transversal total es enorme; la velocidad media disminuye y aumenta el tiempo de intercambio. Sus paredes constan principalmente de una capa endotelial y membrana basal, con diferencias entre tejidos. Cerebro, músculo, hígado y riñón no poseen una permeabilidad capilar idéntica.
Las venas operan a menor presión y contienen gran parte del volumen sanguíneo. Su alta distensibilidad permite actuar como reservorio. En extremidades, contracciones musculares comprimen venas y válvulas ayudan a dirigir el flujo; los cambios de presión al respirar también favorecen retorno. No todas las venas poseen válvulas y estas no bombean por sí mismas.
La presión arterial se expresa habitualmente mediante un valor sistólico y uno diastólico. Son puntos del ciclo, no presiones «del corazón» y «del resto del cuerpo». Varían con sitio, postura, actividad, manguito y técnica. La presión arterial media se relaciona con gasto cardíaco y resistencia vascular sistémica, pero reducirla a una multiplicación oculta pulsos, distribución regional y regulación temporal.
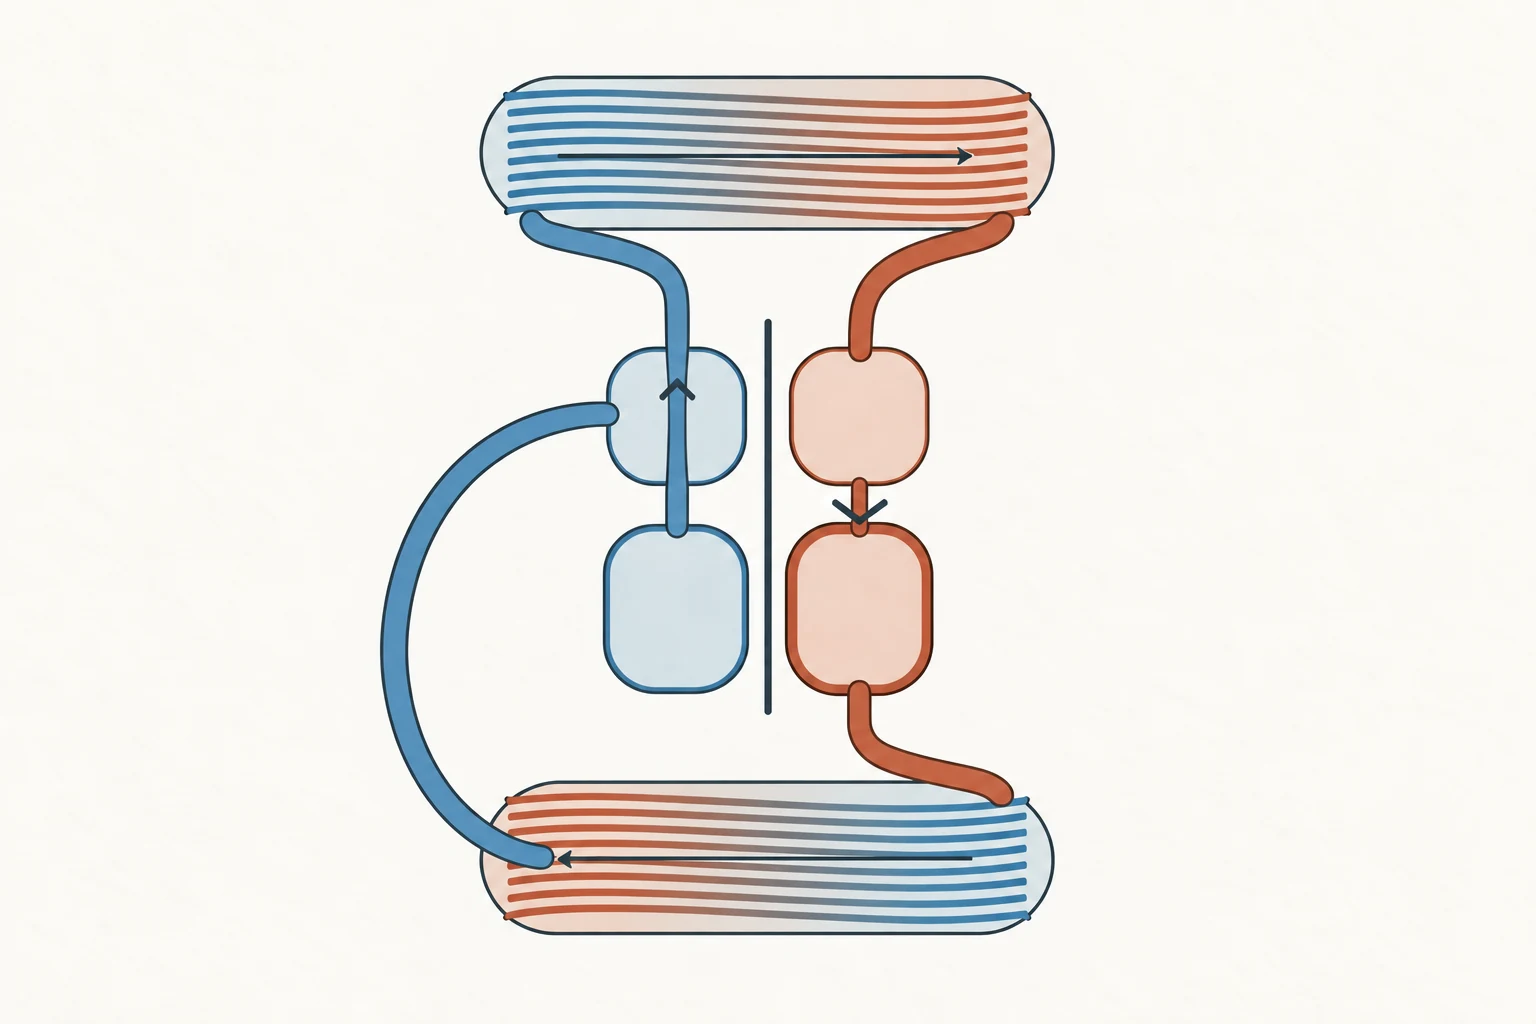
Clave de lectura. El lado derecho impulsa sangre hacia el lecho pulmonar; el izquierdo recibe ese retorno e impulsa hacia el lecho sistémico. Los cambios de color ocurren sólo en los lechos de intercambio y codifican contenido relativo de oxígeno, no el color literal de la sangre ni presión.
91.3. Intercambio capilar y retorno venoso#
Oxígeno, dióxido de carbono y moléculas pequeñas se desplazan entre sangre e intersticio por difusión y transporte. La dirección neta depende de gradientes y consumo. El oxígeno sale de capilares sistémicos porque los tejidos lo utilizan; el dióxido de carbono producido entra en sangre. La distancia corta ayuda, pero el flujo debe renovar ambos lados.
El agua atraviesa paredes capilares según una combinación de presiones hidrostáticas y efectos osmóticos de proteínas. El modelo clásico de fuerzas de Starling sigue siendo útil si se entiende su revisión moderna: la capa de glicocálix endotelial y el drenaje linfático modifican cómo se interpreta la filtración. No existe necesariamente una reabsorción sostenida y simétrica en el extremo venoso de todos los capilares.
Parte del líquido filtrado entra en capilares linfáticos y retorna finalmente a la circulación. El sistema linfático también transporta lípidos absorbidos y células inmunitarias. Si aumenta filtración, se bloquea drenaje o cae la retención de proteínas en plasma, puede acumularse líquido intersticial: edema. La misma apariencia puede proceder de mecanismos diferentes; observar hinchazón no identifica por sí solo la causa.
El retorno venoso debe igualar al gasto cardíaco en estado estable. Depende de volumen, tono venoso, postura, bombas muscular y respiratoria y presión en la aurícula derecha. Al ponerse de pie, la gravedad aumenta presión en vasos de las piernas y desplaza volumen. Barorreceptores detectan menor estiramiento arterial y ajustan corazón y vasos en segundos. Si la compensación es insuficiente, disminuye transitoriamente la perfusión cerebral y aparece mareo.
El flujo local se adapta a actividad. Un músculo que trabaja acumula metabolitos y señales que dilatan arteriolas; el corazón y el sistema nervioso sostienen presión global mientras distintas regiones cambian resistencia. «Más sangre donde se necesita» resume el resultado, pero no una inteligencia central que mida cada célula: emerge de control local y reflejos sistémicos.
91.4. Componentes de la sangre#
La sangre combina plasma y elementos celulares. El plasma es agua con iones, nutrientes, metabolitos, hormonas y proteínas. La albúmina contribuye al transporte y a la presión osmótica; globulinas incluyen transportadores y anticuerpos; fibrinógeno participa en coagulación. «Plasma» conserva factores de coagulación; el suero es el líquido obtenido después de que la sangre coagula y se retira el coágulo.
Los eritrocitos o glóbulos rojos transportan gases mediante hemoglobina. Su forma bicóncava aumenta relación superficie-volumen y deformabilidad. Al madurar pierden núcleo y muchas estructuras, lo que libera espacio para hemoglobina pero limita reparación y reproducción. Se producen en médula ósea bajo influencia de eritropoyetina, señal asociada principalmente al riñón. Tras unos meses, macrófagos recuperan componentes; el hierro puede reutilizarse.
La hemoglobina une oxígeno de manera reversible. La unión de una molécula modifica afinidad por las siguientes, produciendo una curva sigmoidea. Acidez, dióxido de carbono, temperatura y moléculas del eritrocito desplazan la afinidad y facilitan descarga en tejidos activos. La saturación no equivale al contenido total de oxígeno: una persona con poca hemoglobina puede mostrar alta saturación y transportar menos oxígeno.
Los leucocitos o glóbulos blancos incluyen varios linajes de defensa y regulación. Algunos circulan brevemente y actúan en tejidos; otros desarrollan memoria. Contarlos no resume la competencia inmunitaria. Las plaquetas son fragmentos celulares derivados de megacariocitos; se adhieren, se activan y proporcionan una superficie para reacciones de coagulación.
El hematocrito expresa la fracción del volumen sanguíneo ocupada por eritrocitos. Depende tanto de masa de células como de volumen plasmático. Puede aumentar por producción de eritrocitos o por pérdida de agua, y disminuir por pérdida celular o expansión del plasma. Una cifra requiere contexto y no debe interpretarse como medida directa de «calidad de la sangre».
91.5. Coagulación y mantenimiento de la circulación#
La hemostasia limita pérdida de sangre sin solidificar toda la circulación. Tras una lesión, el vaso puede contraerse, las plaquetas se adhieren a estructuras expuestas y se agregan, y una red de reacciones genera trombina y fibrina. La fibrina estabiliza el tapón. Después, mecanismos anticoagulantes y fibrinolíticos restringen y remodelan el coágulo.
La representación tradicional como dos cascadas separadas —intrínseca y extrínseca— organiza pruebas de laboratorio, pero la coagulación en el cuerpo ocurre sobre superficies celulares en fases superpuestas. Factor tisular inicia señales, pequeñas cantidades de trombina activan componentes y superficies plaquetarias permiten amplificación. Calcio y fosfolípidos participan; hígado y vitamina K son importantes para varios factores.
La coagulación debe localizarse. El endotelio intacto produce señales que inhiben activación y favorecen flujo; la sangre en movimiento diluye factores; inhibidores bloquean enzimas; la fibrinólisis degrada fibrina. Si predomina el sellado, aparece trombosis; si falla, sangrado. Ninguna de las dos condiciones se deduce sólo del «espesor» aparente de la sangre.
El coágulo no es lo mismo que una placa de ateroma. Una placa se desarrolla durante años en la pared arterial mediante retención de lípidos, inflamación y remodelado. Si se rompe o erosiona, puede desencadenar un trombo agudo. Distinguir proceso crónico de evento de coagulación evita pensar que ambos se previenen o tratan de la misma forma.
91.6. Regulación del flujo según las necesidades de los tejidos#
El organismo distribuye un gasto finito. En reposo, riñones, encéfalo, hígado y tubo digestivo reciben grandes flujos por funciones distintas. Durante ejercicio, aumenta el gasto cardíaco y el músculo activo dilata su microcirculación. Tras una comida, el territorio digestivo cambia su demanda. La piel recibe más flujo al disipar calor. Estas redistribuciones no siguen una prioridad fija: dependen de intensidad, temperatura, volumen y señales.
Los mecanismos locales responden a oxígeno, dióxido de carbono, pH, adenosina, potasio, estiramiento y señales endoteliales. La autorregulación mantiene flujo relativamente estable ante ciertos cambios de presión. El sistema simpático puede contraer vasos en algunos territorios y ajustar corazón; hormonas y riñones operan en escalas mayores mediante volumen y resistencia.
El cerebro y el corazón protegen su perfusión mediante controles potentes, pero no son invulnerables. Un estrechamiento puede compensarse en reposo y limitar flujo durante demanda. Una presión global normal no garantiza microcirculación adecuada, y un alto gasto no garantiza que el flujo llegue donde se necesita.
La circulación muestra el principio central de la Parte X: una variable útil surge de relaciones. Presión, flujo, contenido de oxígeno y volumen no son intercambiables. El capítulo siguiente añadirá la ventilación y mostrará que transportar oxígeno exige alinear aire, sangre y metabolismo.
Preguntas de transferencia#
Una arteria siempre lleva sangre rica en oxígeno#
Ejemplo construido. Se identifica un vaso pulmonar como vena porque su sangre contiene menos oxígeno. ¿Cuál es el error?
Mostrar respuesta razonada
Arteria y vena se definen por dirección respecto del corazón. La arteria pulmonar sale del ventrículo derecho hacia los pulmones y puede contener menos oxígeno; las venas pulmonares regresan a la aurícula izquierda con más. Oxigenación y tipo de vaso son propiedades distintas.
Una saturación normal garantiza transporte suficiente#
Ejemplo construido. Un pulsioxímetro muestra saturación alta y se concluye que todos los tejidos reciben oxígeno suficiente. ¿Qué falta considerar?
Mostrar respuesta razonada
La saturación indica la fracción de sitios de hemoglobina ocupados, no cuánta hemoglobina existe, cuánto flujo llega ni cuánto extraen los tejidos. Anemia, bajo gasto o mala perfusión pueden reducir entrega aunque la saturación sea alta. También importan precisión del instrumento y contexto.
Elevar la presión siempre aumenta el flujo de cada órgano#
Ejemplo construido. Se duplica una diferencia de presión y se predice que todos los tejidos recibirán el doble de flujo. ¿Por qué no es una conclusión segura?
Mostrar respuesta razonada
La relación depende de resistencia, que cambia con contracción vascular, geometría y autorregulación. Los órganos están conectados en una red y no todos ven la misma diferencia efectiva. La ecuación lineal ayuda para un estado dado; no garantiza proporcionalidad cuando el sistema responde.
Un coágulo y una placa arterial son lo mismo#
Ejemplo construido. Una explicación llama «sangre endurecida durante años» a una placa. ¿Cómo se distinguen los procesos?
Mostrar respuesta razonada
La placa se forma dentro de la pared mediante retención de lípidos, inflamación y tejido remodelado. Un trombo se forma con plaquetas y fibrina en la luz o superficie dañada, a menudo de manera rápida. Una placa puede desencadenar trombosis, pero no son la misma estructura ni escala temporal.
Fuentes y lecturas del capítulo#
OpenStax. Anatomy and Physiology 2e, capítulos 18–21. Base accesible para sangre, corazón, vasos, circulación y sistema linfático. (libro)
Pittman, Roland N. Regulation of Tissue Oxygenation. Integra circulación, microcirculación, difusión y consumo de oxígeno. (NCBI Bookshelf)
Hall, John E.; Hall, Michael E. Guyton and Hall Textbook of Medical Physiology, 14.ª edición. Referencia para ciclo cardíaco, hemodinámica, retorno venoso y regulación regional. (registro editorial)
Michel, C. Charles; Woodcock, Thomas E.; Curry, Fitz-Roy E. «Understanding and Extending the Starling Principle». Acta Anaesthesiologica Scandinavica 64 (2020). Revisión del intercambio de líquido capilar, glicocálix y sistema linfático. (PubMed)
Hoffman, Maureane; Monroe, Dougald M. «A Cell-based Model of Hemostasis». Marco para comprender coagulación sobre superficies celulares más allá de una cascada lineal. (PubMed Central)