PARTE IX · Biodiversidad, ecología y biosfera
85
Comportamiento animal: función, aprendizaje y comunicación
Cómo explicar acciones flexibles sin confundir mecanismo, función e intención
En este capítulo
Un ave canta al amanecer. Podemos preguntar qué circuitos nerviosos activan el canto, cómo aprendió su secuencia, si cantar modifica sus probabilidades de atraer pareja o conservar un territorio, y cómo aparecieron cantos semejantes entre sus parientes. Las cuatro respuestas podrían ser correctas al mismo tiempo. Ninguna sustituye a las demás.
La conducta es actividad observable en relación con condiciones internas y externas. Incluye desplazarse, alimentarse, cortejar, regular la temperatura, cuidar crías o permanecer inmóvil ante una amenaza. Describirla exige decidir qué se medirá: duración, frecuencia, secuencia, dirección, intensidad o consecuencia. Palabras como «agresivo», «inteligente» o «cooperativo» pueden resumir observaciones, pero se vuelven engañosas si no se traducen en operaciones comprobables.
Una herramienta básica es el etograma, un catálogo de conductas definidas antes de observar. En vez de anotar que un animal está «nervioso», puede registrarse cuántas veces cambia de lugar, cuánto tarda en acercarse o qué distancia conserva. Las categorías deben distinguirse entre sí y dos observadores deberían clasificar de forma semejante la misma secuencia. La grabación automatizada amplía el volumen de datos, pero no resuelve por sí sola qué significa un movimiento: el modelo hereda las definiciones, el muestreo y los errores de quienes lo entrenan.
El desafío consiste en explicar una acción sin atribuir al animal nuestras razones y sin reducirlo a una máquina rígida. Genes, desarrollo, experiencia, estado fisiológico y ambiente participan en proporciones distintas. La selección natural ayuda a explicar por qué ciertas variantes persistieron, pero no significa que cada acto sea óptimo ni que el individuo calcule su valor evolutivo. La etología avanza cuando separa niveles de explicación y después muestra cómo se conectan.
85.1. Causas inmediatas e historia evolutiva#
Niko Tinbergen propuso distinguir cuatro preguntas complementarias. El mecanismo identifica estímulos, órganos sensoriales, circuitos, hormonas y movimientos que producen una conducta ahora. La ontogenia pregunta cómo cambia durante la vida mediante maduración, práctica y experiencia. La función o significado adaptativo estudia cómo variantes de la conducta afectan supervivencia y reproducción bajo condiciones definidas. La filogenia reconstruye su historia comparando especies y antepasados.
Volvamos al canto. Una explicación mecanística podría seguir la luz matinal, el estado hormonal, la actividad de núcleos cerebrales y el aparato vocal. Una investigación ontogenética compararía individuos expuestos o no a tutores durante periodos sensibles. Para probar función se medirían respuestas de rivales, elección de pareja y éxito reproductivo, no sólo el hecho de que el canto parezca atractivo. La historia evolutiva requeriría comparar estructura y desarrollo del canto en un árbol de parentesco.
«Canta porque quiere atraer pareja» mezcla niveles. Podría describir una meta conductual, pero no identifica el mecanismo y asume una función sin probarla. Incluso si el canto aumenta apareamiento, puede cumplir además defensa territorial o reconocimiento individual. Su forma actual podría haber surgido a partir de señales con otra función. Evolución reutiliza estructuras y conductas; la utilidad presente no revela por sí sola el origen.
La función se contrasta comparando consecuencias. Si individuos que ejecutan una variante dejan, en promedio, más descendencia bajo ciertas condiciones, existe evidencia de una ventaja selectiva. Aun así, una correlación puede deberse a estado corporal: quizá los animales más sanos cantan más y también se reproducen mejor. Experimentos de reproducción de sonidos, manipulaciones prudentes y seguimiento individual ayudan a separar alternativas.
Las explicaciones históricas contienen incertidumbre. La conducta rara vez fosiliza directamente, así que se infiere a partir de especies actuales, anatomía, genomas y huellas indirectas. Similitudes entre parientes pueden proceder de un antepasado común; semejanzas entre linajes lejanos pueden haber evolucionado de manera independiente. El marco de las cuatro preguntas no divide la biología en compartimentos: impide presentar una pieza como explicación completa. (Nesse, 2019)
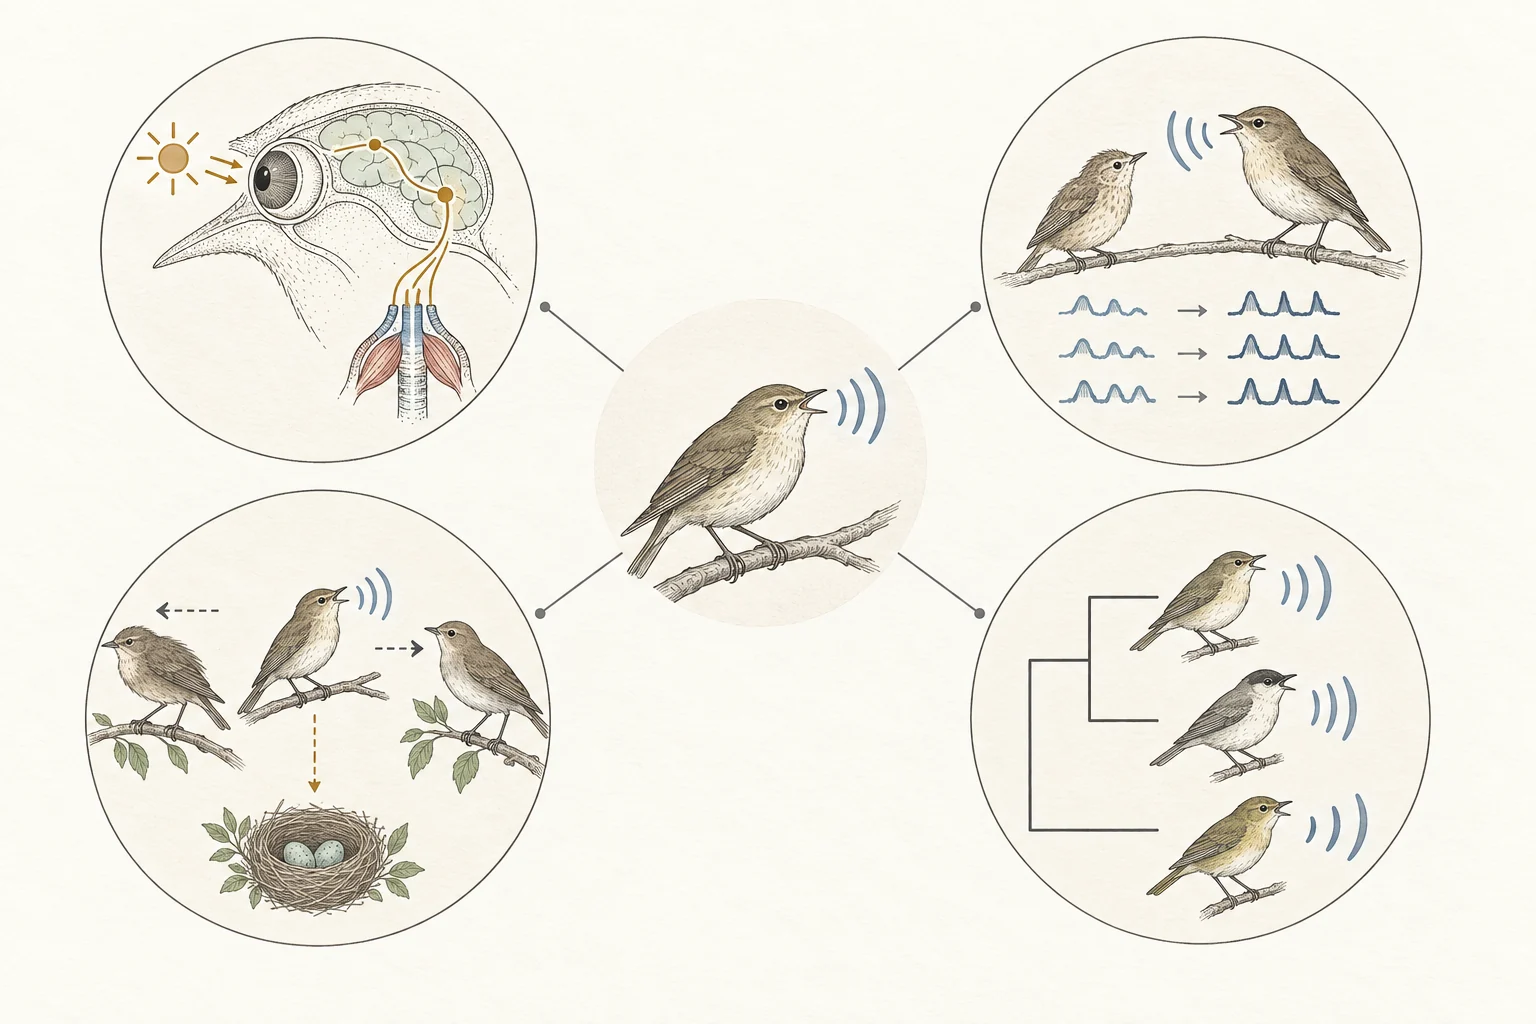
Clave de lectura. Mecanismo y desarrollo explican cómo aparece la conducta en un individuo; función e historia evolutiva examinan sus consecuencias y su trayectoria entre generaciones. Son preguntas complementarias: demostrar una no responde automáticamente las otras.
85.2. Conducta innata, aprendizaje y plasticidad#
Llamar innata a una conducta no significa que aparezca sin genes, ambiente ni desarrollo. Significa, de forma más prudente, que emerge de manera fiable en individuos de una población aun sin el aprendizaje específico que parecía necesario. Un reflejo depende de neuronas que debieron crecer, músculos que necesitan energía y receptores expuestos a un entorno. La experiencia puede ajustar incluso respuestas muy estables.
El aprendizaje es un cambio relativamente persistente en la conducta o en la capacidad de actuar debido a la experiencia. No todo cambio cuenta: la fatiga puede reducir una respuesta sin aprendizaje y la maduración puede producir una habilidad sin práctica particular. Para distinguirlos se requieren controles, repetición y, a veces, pruebas después de un intervalo.
En la habituación, disminuye la respuesta a un estímulo repetido sin consecuencia relevante. Permite no gastar atención o energía, pero debe distinguirse de agotamiento sensorial. En el condicionamiento, un animal aprende relaciones entre sucesos o entre una acción y sus consecuencias. Una asociación no exige que formule una regla consciente; basta con que la experiencia cambie probabilidades futuras. El aprendizaje espacial, la imitación y la resolución de problemas añaden memoria y representación en grados que deben investigarse, no suponerse por semejanza con humanos.
El aprendizaje social ocurre cuando observar a otros modifica la adquisición de información o conducta. Puede ahorrar exploraciones costosas, pero también propagar una opción desactualizada. Si una población conserva variantes transmitidas socialmente durante generaciones, se habla de tradición o cultura animal según criterios explícitos. La etiqueta no demuestra lenguaje humano, enseñanza deliberada ni instituciones: identifica persistencia social más allá de la transmisión genética.
La plasticidad conductual permite responder de manera distinta a contextos diferentes. Tiene límites: percibir señales, mantener circuitos y probar alternativas cuesta tiempo y energía. En ambientes previsibles, una respuesta rápida y poco flexible puede superar a otra que requiere aprendizaje. Además, individuos de una misma población pueden mostrar diferencias consistentes —por ejemplo, en exploración o tolerancia al riesgo— junto con plasticidad. Promediarlos puede ocultar estrategias y estados distintos.
Genes y aprendizaje no compiten como explicaciones excluyentes. La selección puede favorecer reglas de aprendizaje, periodos sensibles, preferencias atencionales y capacidades de memoria. La experiencia, a su vez, cambia expresión génica, conexiones nerviosas y decisiones. La pregunta rigurosa no es «¿nació o se hizo?», sino qué variación procede de diferencias heredables, historia de desarrollo, ambiente actual y su interacción.
Separar esas contribuciones requiere diseños comparativos. Criar individuos en ambientes controlados permite aislar experiencias, pero puede retirar condiciones necesarias para un desarrollo normal. El intercambio de crías entre progenitores distingue algunos efectos genéticos y de crianza; comparar poblaciones en un ambiente común reduce diferencias ambientales recientes. Ningún diseño elimina todas las alternativas. La convergencia entre observación de campo, experimento y comparación filogenética ofrece una base más sólida que una sola prueba espectacular.
85.3. Búsqueda de recursos y decisiones bajo restricciones#
Buscar alimento enfrenta elecciones repetidas: dónde ir, qué manipular, cuánto permanecer y cuándo retirarse. Un animal obtiene energía y nutrientes, pero paga desplazamiento, tiempo, exposición a depredadores, competencia y oportunidades perdidas. La teoría de forrajeo construye modelos que convierten esos componentes en predicciones contrastables.
Supongamos que un ave llega a un arbusto con frutos. Al principio encuentra muchos; después debe buscar más tiempo entre ramas vacías. Permanecer ofrece una ganancia decreciente, mientras viajar a otro arbusto cuesta tiempo y energía. Un modelo de parches predice que debería irse cuando la tasa adicional esperada cae respecto de lo obtenible en el ambiente, incluido el viaje. No afirma que el ave resuelva una ecuación: selección, aprendizaje y reglas sensoriales pueden producir una conducta aproximada.
La «mejor» decisión depende de la moneda elegida. Maximizar energía por minuto no equivale a obtener un nutriente escaso, reducir variación o evitar ser comido. Un animal hambriento puede aceptar un riesgo que otro saciado evita. La presencia de crías, competidores o información incompleta altera el valor de una opción. Un modelo útil declara qué maximiza, qué restricciones incluye y qué observación lo refutaría.
Los experimentos de elección requieren cuidado. Preferir una opción en una caja no garantiza usarla en la naturaleza, donde cambian distancia, depredación y aprendizaje previo. Si dos alimentos difieren a la vez en color, olor y cantidad, no puede saberse qué variable guio la respuesta. La ausencia de elección también es informativa sólo si el animal percibió las opciones y estaba motivado para responder.
El orden de presentación puede generar preferencia aparente; el lado del recinto, rastros de olor o señales involuntarias del experimentador también. Aleatorizar posiciones, ocultar al observador la condición y repetir pruebas ayuda a controlar esos efectos. Pero demasiadas repeticiones introducen aprendizaje y habituación. La unidad estadística debe ser el individuo, no cada elección como si procediera de un animal independiente; de otro modo, un ejemplar muy activo puede producir una certeza ficticia.
La navegación combina señales. El sol, las estrellas, el campo magnético, olores, corrientes y puntos del paisaje pueden contribuir a distintas escalas. Desplazar un animal, alterar una señal o seguir trayectorias permite inferir su peso. Una ruta recta no prueba un mapa mental; puede resultar de una brújula simple. Al contrario, una ruta sinuosa no implica error: podría seguir alimento, viento o refugio.
Las decisiones animales están limitadas y son suficientes, no necesariamente perfectas. La información tiene ruido, el futuro cambia y el cuerpo hereda compromisos. Comparar conducta observada con un modelo ideal ayuda precisamente porque revela qué costes o mecanismos faltaban, no porque espere una optimización sin fricciones.
85.4. Comunicación y señales#
Hay comunicación cuando una señal producida por un emisor modifica la conducta de un receptor y esa interacción ha sido moldeada por selección debido a sus efectos. Una pista o indicio también aporta información, pero no evolucionó por beneficiar al emisor mediante la respuesta. El dióxido de carbono exhalado guía a un mosquito aunque el animal que lo emite no gane con ello; una llamada de cortejo, en cambio, existe en parte por cómo responden receptores.
Las señales pueden ser químicas, acústicas, visuales, eléctricas o mecánicas. Cada canal enfrenta restricciones. El sonido atraviesa obstáculos pero puede revelar ubicación; una sustancia química persiste y sigue corrientes, aunque se actualiza con lentitud; un destello visual es rápido, pero requiere línea de visión y luz. Muchas exhibiciones combinan modalidades o componentes, lo que puede aumentar detectabilidad, redundancia o información.
El significado se investiga mediante contexto y respuesta. Una llamada que coincide con depredadores aéreos y provoca ocultamiento no es automáticamente una «palabra para halcón». Puede codificar urgencia, tipo de amenaza o identidad del emisor. Reproducciones controladas, intercambio de señales entre contextos y comparación de respuestas permiten distinguir hipótesis. La revisión sobre lingüística animal de Townsend y colaboradores insiste en definir las unidades y su distribución antes de atribuirles sintaxis o significado humano. (Townsend y colaboradores, 2023)
Emisor y receptor no siempre tienen intereses idénticos. Puede existir engaño si una señal falsa beneficia temporalmente al emisor, pero un sistema lleno de señales inútiles deja de favorecer respuesta. La honestidad puede mantenerse porque falsificar es difícil, porque la señal está físicamente ligada al estado o porque costes y represalias hacen rentable responder sólo a ciertas variantes. No toda señal honesta necesita ser derrochadora: modelos de señalización muestran que la estabilidad depende de información, estrategias y pagos, no de un coste alto por principio. (Lachmann, Számadó y Bergstrom, 2001)
Los receptores también evolucionan. Una señal llamativa para una pareja puede ser interceptada por un depredador; una preferencia sensorial anterior puede ser explotada por nuevos emisores. La comunicación es una interacción dinámica entre producción, propagación, percepción y respuesta. Analizar sólo el color o el sonido sin el canal y el receptor deja el sistema incompleto.
85.5. Cooperación, conflicto y vida social#
Dos animales cooperan en sentido descriptivo cuando su interacción produce un beneficio relevante para ambos o cuando una acción beneficia a otro y su mantenimiento requiere explicación. Cazar en grupo puede elevar la captura, vigilar puede reducir ataques y cuidar crías emparentadas puede aumentar la transmisión de variantes compartidas. Sin embargo, observar proximidad o coordinación no identifica el mecanismo evolutivo.
La selección de parentesco considera efectos sobre reproducción propia y de parientes que comparten variantes por ascendencia. Una forma resumida de la condición de Hamilton es:
La cooperación también puede persistir entre no parientes. Dos individuos pueden obtener beneficios inmediatos al actuar juntos; eso es mutualismo por producto compartido y no requiere recordar favores. Interacciones repetidas, elección de socios, reputación o castigo pueden sostener intercambios contingentes en otros casos. Pero llamar «reciprocidad» a cualquier turno de ayuda exagera la evidencia: hay que mostrar que la conducta futura depende de lo que hizo un socio y excluir beneficios inmediatos más simples. Una revisión de Clutton-Brock concluye que muchas cooperaciones atribuidas a reciprocidad se explican mejor por mutualismo o manipulación. (Clutton-Brock, 2009)
Donde hay beneficio colectivo puede haber conflicto. Un individuo podría aprovechar vigilancia, alimento o cuidado sin pagar el coste. La exclusión, la preferencia por socios fiables y otras formas de control cambian esa ventaja. En sociedades de insectos, parentesco, ecología, división reproductiva y regulación de colonias interactúan; decir que una obrera «se sacrifica por la especie» ignora que la selección no recompensa automáticamente beneficios difusos al grupo.
La dominancia ordena acceso a recursos en algunos grupos, pero no elimina conflicto ni describe toda relación. Una jerarquía puede variar con contexto, sexo, edad y recurso. Redes sociales permiten medir quién interactúa con quién y cómo circula información o enfermedad, pero una línea en la red puede significar proximidad, acicalamiento o agresión. La interpretación depende de cómo se construyó el vínculo.
85.6. Límites de extrapolar conductas entre especies#
Comparar especies revela mecanismos y evolución, pero exige equivalencias válidas. Que dos animales miren un objeto durante el mismo tiempo no implica el mismo proceso: uno podría explorar, otro vigilar y otro quedarse inmóvil por miedo. Una tarea diseñada para manos, visión frontal o motivación alimentaria favorece especies cuyas capacidades coinciden con el aparato.
El antropomorfismo atribuye estados humanos sin evidencia suficiente. Evitarlo no significa negar emociones, dolor o cognición en otros animales. Significa formular predicciones observables y comparar explicaciones. Si decimos que un cuervo «planea», deberíamos especificar si conserva una herramienta para una necesidad futura, cómo se controló el aprendizaje asociativo y qué intervalo separa elección y uso.
Existe el error inverso: asumir que sólo los humanos poseen procesos complejos y reinterpretar cualquier evidencia animal como reflejo. El estándar debe ser simétrico. Conceptos como memoria, expectativa o emoción se sostienen mediante convergencia de conducta, fisiología, neurobiología y manipulación experimental; no por una semejanza aislada ni por exigir lenguaje verbal.
Las condiciones de cautiverio permiten controles, pero alteran experiencia, espacio y consecuencias. Los estudios de campo conservan contexto y enfrentan variables difíciles de separar. Combinar ambos, replicar entre poblaciones y registrar historia individual mejora inferencias. También importa el sesgo de publicación: los resultados llamativos de una especie carismática pueden circular más que los fallos de replicación.
Finalmente, una explicación en una especie no se transfiere por nombre. «Pareja», «familia», «engaño» o «enseñanza» requieren criterios ajustados al sistema. El parentesco filogenético aumenta a veces la probabilidad de mecanismos compartidos, pero convergencia y pérdida pueden romper la expectativa. Comparar bien no consiste en borrar diferencias, sino en diseñar una pregunta que pueda responderse en cada organismo sin exigirle comportarse como nosotros.
Preguntas de transferencia#
Una hormona causa la agresión#
Ejemplo construido. En una población, individuos con mayor concentración de una hormona realizan más ataques. ¿Demuestra esto que la hormona causa agresión?
Mostrar respuesta razonada
No por sí solo. Atacar podría elevar la hormona, un tercer factor podría modificar ambas variables o la relación depender del contexto. Habría que medir secuencias temporales, manipular el sistema dentro de límites éticos y observar si cambia una conducta definida. Aun con causalidad, quedaría por explicar el desarrollo, la función y la historia evolutiva de la respuesta.
Si se aprende, no puede ser una adaptación#
Ejemplo construido. Un ave necesita escuchar tutores para desarrollar su canto. ¿Refuta eso que el canto tenga bases evolucionadas?
Mostrar respuesta razonada
No. La selección puede favorecer capacidad de aprender, atención a ciertos sonidos, un periodo sensible y reglas de producción. La experiencia aporta contenido y ajuste; la historia evolutiva aporta mecanismos y predisposiciones. Para separar componentes se comparan crianzas, poblaciones, parientes y variación heredable sin tratar genes y aprendizaje como alternativas excluyentes.
Elegir la comida con más calorías es siempre óptimo#
Ejemplo construido. Un animal rechaza un alimento muy energético y consume otro menos calórico. ¿Actúa irracionalmente?
Mostrar respuesta razonada
No puede saberse sin medir restricciones. El alimento energético podría contener toxinas, requerir más manipulación, aumentar exposición a depredadores o carecer de un nutriente limitante. También puede faltar experiencia para reconocerlo. Un modelo debe declarar su moneda —energía neta, seguridad, nutrientes o variación— antes de comparar la decisión.
Una llamada diferente equivale a una palabra#
Ejemplo construido. Un primate emite llamadas distintas ante serpientes y aves rapaces. ¿Se ha demostrado que nombra cada depredador?
Mostrar respuesta razonada
Aún no. Las llamadas podrían reflejar urgencia, dirección de huida o estado del emisor. Habría que reproducirlas sin el depredador, controlar identidad y contexto y medir respuestas específicas. Incluso si transmiten categorías, no se sigue que posean sintaxis o significado idénticos al lenguaje humano.
Ayudar hoy prueba reciprocidad mañana#
Ejemplo construido. Dos animales no emparentados se acicalan por turnos. ¿Basta para afirmar que intercambian favores?
Mostrar respuesta razonada
No. El acicalamiento puede beneficiar inmediatamente a ambos, depender de proximidad o dirigirse a zonas inaccesibles sin llevar una cuenta. Para probar reciprocidad habría que mostrar que la ayuda recibida cambia la ayuda posterior hacia el mismo socio, controlar alternativas y seguir interacciones suficientes. La alternancia visible es compatible con varios mecanismos.
Fuentes y lecturas del capítulo#
Nesse, R. M. Tinbergen’s four questions, organized: a response to Bateson and Laland. Aclara la diferencia entre mecanismo, ontogenia, función adaptativa e historia filogenética. (Evolution, Medicine, and Public Health, 2019)
OpenStax. Biology 2e, Behavioral Biology: Proximate and Ultimate Causes of Behavior. Panorama introductorio de conducta, aprendizaje, comunicación y sistemas sociales. (sección 45.7)
Bateson, P. y Laland, K. N. Tinbergen's four questions: an appreciation and an update. Revisión del alcance contemporáneo y la integración de las cuatro preguntas. (Trends in Ecology & Evolution, 2013)
Forsman, A. Rethinking phenotypic plasticity and its consequences for individuals, populations and species. Referencia para flexibilidad, desarrollo y diferencias conductuales consistentes. (Heredity, 2015)
Townsend, S. W. y colaboradores. Animal linguistics: a primer. Marco crítico para distinguir señales, pistas, significado y combinaciones comunicativas. (Biological Reviews, 2023)
Lachmann, M., Számadó, S. y Bergstrom, C. T. Cost and conflict in animal signals and human language. Demuestra por qué la honestidad de una señal no requiere siempre un coste alto en equilibrio. (PNAS, 2001)
Clutton-Brock, T. Cooperation between non-kin in animal societies. Revisión crítica de reciprocidad, mutualismo y manipulación entre individuos no emparentados. (Nature, 2009)
Melis, A. P. y Raihani, N. J. The cognitive challenges of cooperation in human and nonhuman animals. Distingue mecanismos evolutivos y exigencias cognitivas de diferentes formas de cooperación. (Nature Reviews Psychology, 2023)